Az Elaeagnus Umbellata frakciók gátló hatása a melanogenezisre -MSH-stimulált B16-F10 melanomasejtekben
Mar 24, 2023
Absztrakt:
Amikor a bőrt UV-sugárzás éri, a melanociták melanint termelnek. A túlzott melanintermelés a bőr pigmentációjához vezet, ami különféle kozmetikai és egészségügyi problémákat okoz. Ezért olyan biztonságos, természetes gyógymódok kifejlesztése szükséges, amelyek gátolják a melanin termelődését. Az Elaeagnus umbellata-t (EU) régóta széles körben használják népi gyógynövényként olyan farmakológiai tulajdonságai miatt, mint a fekély-, antioxidáns és gyulladáscsökkentő tulajdonságok.
Ebben a tanulmányban az EU-frakciók antioxidáns aktivitását és melanogenezis-gátló hatását vizsgáltuk B16-F10 melanomasejtekben. Az EU-frakciók az antioxidáns aktivitás dózisfüggő növekedését mutatták a gyökfogó aktivitásban. Ezenkívül értékeltük az EU-frakciók hatását a tirozináz aktivitásra és a melanogenezisre -melanocita-stimuláló hormon által kiváltott B16-F10 melanomasejtekben. Az EU nem volt citotoxikus 12,5-50 µg/ml-nél. Az EU-frakciók hatékonyan gátolták a tirozináz aktivitást és a melanogenezist, elnyomták a melanogenezis útjában részt vevő CREB és ERK foszforilációját, és csökkentették a melanogenezishez kapcsolódó fehérjék expresszióját. Érdekes módon a melanogenezis-ellenes hatás 50 µg/mL EU koncentrációban volt a leghatékonyabb, és a frakciók hatása jobb volt, mint a kivonaté. Ezért tanulmányunk azt sugallja, hogy az EU-ban megvan a potenciál a túlzott pigmentáció biztonságos kezelésében vagy a kozmetikumok természetes összetevőjeként.
Az emberi bőr és az új sejtek növekedési üteme szervezetünkben lelassul, a bőr anyagcseréje lelassul, az öregedő sejtek nem tudnak időben és zökkenőmentesen metabolizálódni, és a melanin is nehezen tűnik el. A bőr felszínén lévő természetes hidratáló faktorok fokozatos elvesztésével párosulva a szaruréteg megvastagodik és felhalmozódik, a melanin szintje megnő, a bőrön fokozatosan homályos, sötét foltok jelennek meg. Nem számít, hány fehérítő bőrápoló terméket alkalmazunk, nehezen szívódik fel a bőr. Ezért kutatásunk során azt találtuk, hogy a Cistanche tubulosa funkcionális összetevője, a Cistanche deserticola totál glikozidjai hatékonyan eltávolítják a különböző aktív oxigén szabad gyököket (O2·-, OH·, H2O2, 1O2), és védenek az általuk okozott DNS-károsodástól. Az OH·szabad gyökök és a Cistanche deserticola poliszacharidok késleltethetik a szervek élettani degenerációját és a sejtek morfológiai átalakulását. A fenti összetevők mind antioxidáns és öregedésgátló hatásúak. Ugyanakkor a Cistanche deserticola a tirozináz aktivitását is gátolja a fehérítő hatás elérése érdekében.

Click cistanche tubulosa kivonatú por termék
Kulcsszavak:
Elaeagnus umbellata; bőrfehérítés; antioxidáns; melanogenezis; -MSH.
1. Bemutatkozás
Az emberek bőrszíne a genetikailag jelenlévő melanoszómák mennyiségétől és a melanoszómák bőrben való szétszóródásának mértékétől függ, valamint befolyásolja a napfénynek való kitettség és a környezetszennyezés mértéke [1]. A melanin egy nagy molekulatömegű vegyület, amely állatokban és növényekben található, és fontos pigment, amely meghatározza az emberek szem-, bőr- és hajszínét. A melanogenezis a melanin termelési folyamatára utal, amely az emberi bőr pigmentációjának egyik fő oka. A melanin megvédheti a bőrt a káros UV-sugárzástól, de a túlzott melanintermelés esztétikai problémákhoz, köztük melasmához és szeplőkhöz, valamint egészségügyi problémákhoz, köztük gyulladás utáni hiperpigmentációhoz vezethet [2].
A melanin kulcsfontosságú szerepet játszik a bőr védelmében a különféle ingerekkel szemben, mint például az UV, a reaktív oxigénfajták (ROS) és a -melanocyte stimuláló hormon (-MSH) [3]. Amikor a bőrt UV sugárzás éri, ROS termelődik, és a bőrsejtek felesleges melanint termelnek. Ez a keletkezett ROS elpusztítja az egy- és kétszálú DNS-t, és megtámadja a fehérje- és lipidmolekulákat [4]. A melanin és az antioxidáns enzimek, mint például a peroxidáz, a glutation és a kataláz, semlegesítik a keletkezett ROS-t egy bizonyos szint fenntartása érdekében [5,6]. Az ellenőrizhetetlen túlzott ROS termelés azonban számos problémához vezet, például rákhoz [7]. A melanociták az epidermisz bazális rétegében találhatók, és a tirozináz modulálja őket. Ezek a sejtek melanint termelnek melanogenezis révén, és ebben a folyamatban olyan faktorok vesznek részt, mint a mikroftalmiával összefüggő transzkripciós faktor (MITF) és a tirozinázzal rokon fehérje (TRP-1) [8]. A tirozináz részt vesz abban a folyamatban, amelyen keresztül az L-tirozin 3,4-dihidroxifenilalaninná (DOPA) alakul, amely aztán dopakinonná alakul, amelyből a melanin szintetizálódik. Ezért a tirozináz fontos tényező, amely szabályozza a melanogenezist a bőrsejtekben.
A közelmúltban számos orvosi és kozmetikai iparág a tirozináz-aktivitás-gátlókra összpontosított a pigmentáció és a túlzott melanogenezis okozta pigmentzavar okozta esztétikai problémák megoldására [9]. Különféle vegyi anyagokat, például arbutint, kojsavat, hidrokinont és aszkorbinsavat, amelyek gátolják a melaninszintézist, használnak bőrfehérítő szerként [10]. Ezek az anyagok azonban nem hatolnak be jól a bőrön, és hosszabb használat során olyan mellékhatások léphetnek fel, mint a bőrirritáció, gyulladás, viszketés és pigmentáció [11]. Ezért olyan hatékony fehérítő szerek kifejlesztésére van szükség, amelyek biztonságosan kezelhetik és megelőzhetik az emberi bőr hiperpigmentációját, irritáció nélkül.
Az Elaeagnus umbellata (EU) Ázsia-szerte széles körben elterjedt növény, és a kapcsolódó farmakológiai hatásai miatt régóta használják népi gyógynövényként. Hagyományosan az EU virágait és magjait légúti megbetegedések, köztük a szív- és tüdőbetegségek kezelésére használták, míg a leveleket tonikként és bélbetegségek kezelésére használták [12,13]. Ezenkívül az EU-t izomlazítóként, fájdalomcsillapítóként, fekély-, cukorbetegség- és lázcsillapítóként is használják [14]. Az EU összetevői rákellenes [15], antioxidáns és gyulladáscsökkentő hatásúak [16], az EU-kivonat pedig hatással van a bőr fehérítésére és a ráncok javítására [17]. Az ágak és levelek általi bőrfehérítés hatásáról azonban az EU-frakciókban még nem végeztek vizsgálatokat. Ezért ennek a vizsgálatnak a célja az volt, hogy megfigyeljük az ágak és levél eredetű EU-frakciók in vitro antioxidáns aktivitását és melanogenezis-gátlását melanint termelő B16-F10 egér melanomasejteken, és megerősítsük az ágak és levél- az EU-ból származó kozmetikai bőrfehérítő szer.
2. Anyagok és módszerek
2.1. Anyagok és reagensek

2.2. EU-kivonat és frakciók, valamint mintaelőkészítés
Az EU ágait és leveleit (1:1) a Jeonbuk Institute for Food Bioindustry (Jeonju, Jeonbuk, Korea) biztosította. Az EU-t (50 g) turmixgépben őröltük, és az EU-porokat 70 százalékos etanollal 24 órán át szobahőmérsékleten extraháltuk. Az oldószert sterilen szűrtük standard szitán (Advantec MFS, Taipei, Tajvan), és csökkentett nyomáson rotációs bepárló segítségével (EYELA, N{5}}, Tokió, Japán) bepároltuk. Az extraktumot liofilizáltuk fagyasztva szárítóval (OPERON, FDU{6}}, Gimpo, Korea), hogy eltávolítsuk a maradék etanolt, és így 2,4 g (4,8 százalékos hozam) EU 70 százalékos etanolos kivonat (EUEE) port kapjunk. 2,4 g EUEE-t desztillált vízben szuszpendáltunk, és etil-acetát (EUEA, 0,19 g) vagy butanol (EUBu, 0,91 g) frakciókkal megosztottuk. Az összes kivonatot és frakciót felhasználásig 4 ◦C-on tároltuk.
2.3. Nagy teljesítményű folyadékkromatográfia (HPLC) elemzés
A kromatográfiás elemzéseket UV-detektorral felszerelt Elite Lachrom HPLC-DAD rendszerrel (Hitachi HighTechnologies Co., Tokió, Japán) végeztük. A 260 nm-es UV-detektort és az analitikai YMC ODS-AM (5 mM, 4,6 × 250 mM) oszlopot (Kyoto, Japán) használtuk a belső standard módszeren alapuló kvantifikáláshoz. Az oszlop hőmérséklete 35 ◦C, a mozgófázis áramlási sebessége 1 ml/perc. Az eluálószer gradiens: (A) oldószer=0,1% ecetsav vízben és (B) oldószer=0,1% ecetsav acetonitrilben. A futási idő 35 perc volt, a gradiens pedig a következő: (A)/(B)=88/12 (0 perc) → (A)/(B)=78/22 (0– 18 perc) → (A)/(B)=72/28 (18–28 perc) → (A)/(B)=62/38 (28–35 perc). A HPLC elemzés az 1. ábrán látható.

2.4. Sejtkultúra
Az egér melanoma B16-F10 sejtvonalat (CRL-6475) az American Type Culture Collection-től (ATCC, VA, USA) vásároltuk. A sejteket DMEM-ben tenyésztettük, kiegészítve 10% hővel aktivált FBS-sel és 1% sztreptomicinnel (100 µg/ml)/penicillinnel (100 egység/ml). A B16-F10 sejteket párásított 5 százalékos CO2-ban 37 ◦C-on inkubáltuk.
2.5. Sejtéletképességi vizsgálat
A minták citotoxicitását MTT assay segítségével értékeltük. A B16-F10 melanomasejteket (1 × 10⁴ sejt/lyuk) egy 96-lyukú lemezen tenyésztettük, és különböző koncentrációjú kivonatokkal és frakciókkal (12,5, 25, 50 és 100 µg/ml) inkubáltuk. vagy arbutin (100 µg/ml) 24 órán keresztül 37 °C-on. Inkubálás után 500 µg/ml MTT-oldatot adtunk a lyukakba, és a lemezt tovább inkubáltuk 4 órán át 37 °C-on. Ezután az egyes lyukak tápközegét eltávolítottuk, és 200 µl dimetil-szulfoxidot (DMSO) adtunk hozzá a formazánkristályok szolubilizálására. A lemez abszorbanciáját 570 nm-en detektáltuk mikrolemez-leolvasóval (Synergy HTX Multi-Mode Reader, BioTek, Winooski, VT, USA).
2.6. DPPH gyökfogó tevékenység
Az EU kivonat és frakciók DPPH gyökfogó aktivitását az egyes mintákban lévő DPPH gyökök redukáló erejének mérésével igazoltuk. Különféle koncentrációjú (12,5, 25 és 50 µg/ml) EU-kivonatot és frakciókat vagy 20 µg/ml aszkorbinsavat (pozitív kontroll) 500 µl-ben adtunk 2 ml 0,15 mM DPPH-oldathoz. Az oldatot 10 másodpercig vortexeljük, hogy biztosítsuk az alapos keveredést, majd 30 percig szobahőmérsékleten, sötétben inkubáltuk. A keverék abszorbanciáját ezután 517 nm-en mértük mikrolemez-leolvasóval (Biotek, Winooski, VT, USA).

2.7. ABTS gyökfogó vizsgálat
Az ABTS gyökfogó oldatot úgy állítottuk elő, hogy 7,4 mM ABTS oldatot és 2,6 mM kálium-perszulfátot 1:1 arányban (pH 7,4) összekevertünk, majd az oldatot szobahőmérsékleten 24 órán át reagáltattuk. Az ABTS oldatot ezután 0,70 ± 0,03 abszorbanciára állítottuk be 732 nm-en. Minden 10 µl-es mintát 190 µl ABTS-oldattal reagáltatunk 10 percig szobahőmérsékleten, és az abszorbanciát 732 nm-en mértük mikrolemez-leolvasóval (Biotek, Winooski, VT, USA).
2.8. Gomba tirozináz gátló aktivitás
A melanogenezisben döntő szerepet játszó tirozináz gátló aktivitásának elemzésére gomba tirozinázt és L-DOPA szubsztrátot használtunk. Először egymás után 15 0 µl 0,1 M foszfát puffert (pH 6,8), 20 µl 5 mM L-DOPA oldatot és 20 µl különböző koncentrációjú EU-kivonatot és frakciókat adtunk hozzá egymás után, majd 100 µl 250-et. U/ml gomba tirozinázt adtunk hozzá a reakció elindításához. Az elegyeket 37 ◦C-on 10 percig inkubáltuk, és az abszorbanciát 475 nm-en mértük mikrolemez-leolvasóval (Biotek, Winooski, VT, USA). A tirozináz gátlási aktivitást a következő képlettel számítottuk ki:
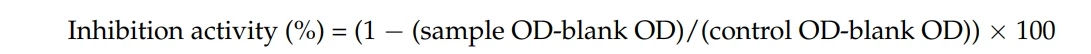
2.9. A celluláris tirozináz aktivitás meghatározása
A B16-F10 melanomasejteket 1 × 10⁵ sejt/lyuk sűrűséggel oltottuk be hatlyukú lemezekre, amelyek 2 ml DMEM-et tartalmaztak. Hat csoportot hoztak létre: kontroll csoport, nem kezelt; -MSH csoport, csak 100 nM -MSH; arbutin csoport, -MSH és arbutin (10 mM); EUEE csoport, -MSH és EUEE kivonat (12,5, 25 és 50 µg/ml); EUEA csoport, -MSH és EUEA frakciók (12,5, 25 és 50 µg/ml); és EUBu csoport, -MSH és EUBu frakciók (12,5, 25 és 50 µg/ml). A hatlyukú lemezeket egy éjszakán át 37 °C-on inkubáltuk 5 százalékos CO2-tartalmú inkubátorban. Ezután a sejteket -MSH-nak (100 nM) 48 órán át exponáltuk, és különböző koncentrációjú EUEE-vel, EUEA-val és EUBu-val vagy arbutinnal (10 mM) kezeltük 24 órán át. A sejteket háromszor mostuk foszfáttal pufferolt sóoldattal (PBS), majd lizáltuk. A lizátumot 16,000 × g-vel centrifugáltuk 20 percig.
Ezután minden lizátum fehérjetartalmát a BCA Protein Assay Kit (Thermo Scientific, Vantaa, Finnország) segítségével határoztuk meg. A fehérjeszintet ezután 20 µg-ra állítottuk be minden mintában. A 2,5 mM L-DOPA-t 0,1 M foszfátpufferben tartalmazó lizátumokat (100 µl) egy 96-lyukú lemez lyukaiba vittük át, és 1 órán át 37 °C-on inkubáltuk. A lizátumok abszorbanciáját 475 nm-en mértük mikrolemez-leolvasóval (Biotek, Winooski, VT, USA). Az intercelluláris tirozináz aktivitást a következő képlettel számítottuk ki:

Az OD-k a minta abszorbanciáját, az ODb pedig a kontroll abszorbanciáját jelentik. Az arbutint használták standardként.
2.10. Melanintartalom mérése
A B16-F10 sejtekben lévő melanin mennyiségének meghatározásához ezeket egy 24-lyukú lemezre oltottuk 2 × 10⁴ sejt/lyuk sűrűséggel, és 24 órán keresztül inkubáltuk DMEM-ben, 10 százalékos FBS-sel. A B16-F10 sejteket különböző koncentrációjú EUEE, EUEA és EUBu (12,5, 25 és 50 µg/ml) és pozitív kontroll arbutinnal (10 mM) előkezeltük 1 órán át, majd 100 nM MSH további 72 óráig. Ezt követően a sejteket PBS-sel történő mosás után gyűjtöttük össze. A centrifugálással kapott pelletet (12,000 × g, 10 perc) 10% DMSO-t tartalmazó 1 N NaOH-ban lizáltuk 90 °C-on 30 percig. Mindegyik lyuk melanintartalmát 405 nm-en mértük mikrolemez-leolvasóval (Biotek, Winooski, VT, USA). A melanin mennyiségének meghatározásához a kísérlet során termelt összes mennyiséget tekintettük standardnak (100 százalék), és ennek a standardnak az arányában határoztuk meg az egyes kivonatokkal és frakciókkal kezelt csoportok gátlási arányát.

2.11. Western Blot analízis
A B{{0}}F10 egér melanoma sejteket (1 × 10⁶ sejt/lyuk) 6 cm-es edényekben tenyésztettük, és egy éjszakán át 37 °C-on inkubáltuk, majd a sejteket -MSH-val (10 µM) előkezeltük 24 percig. h. Ezután a sejteket különböző koncentrációjú (12,5, 25 és 50 µg/ml) EU-kivonattal és frakciókkal vagy 100 µg/ml arbutinnal kezeltük 24 órán keresztül. A sejteket PBS-sel gyűjtöttük össze, majd centrifugáltuk 12,000× g-vel 15 percig 4 ◦C-on. A felülúszó eltávolítása után a sejteket jéghideg Pro-prep fehérje lízis pufferrel lizáltuk 1% proteáz és foszfatáz inhibitorok hozzáadásával, és jégen tartottuk 40 percig. A frakcionált fehérjék mennyiségét Bradford protein vizsgálattal határoztuk meg. Egyenlő mennyiségű fehérjét (25 µg) töltöttünk be, és 8%-os vagy 10%-os nátrium-dodecil-szulfát-poliakrilamid gélelektroforézissel elválasztottuk, és polivinilidén-fluorid (PVDF) membránra vittük át. A PVDF membránokat 5% sovány tejjel blokkoltuk 0,1% Tween 20 (TBS-T) puffert tartalmazó Tris-puffered sóoldatban (TBS) 1 órán át szobahőmérsékleten, és inkubáltuk p-CREB, CREB, p elleni specifikus primer antitestekkel. -ERK, ERK, MITF, TRP-1, TRP-2, tirozináz és -aktin egy éjszakán át 4 ◦C-on.
Ezt követően a membránokat háromszor 10 percig öblítettük TBS-T pufferrel, majd szobahőmérsékleten 2 órán át torma-peroxidázzal konjugált másodlagos antitesttel reagáltattuk. A membránokat TBS-T pufferrel ötször öblítettük, és a fehérjéket fokozott kemilumineszcenciás oldattal detektáltuk. A sávképeket Davinch-In vivo és nyugati képalkotó rendszerrel (Davinch-K, Szöul, Korea) végeztük.
2.12. Statisztikai analízis
Minden érték átlag ± SEM (az átlag standard hibája) szerepel legalább három független kísérletből, és a GraphPad Prism 5.0 szoftvert (GraphPad, San Diego, CA, USA) használtuk a statisztikai elemzéshez. A csoportok közötti statisztikai különbségek összehasonlítására egyirányú varianciaanalízist, majd Bonferroni post hoc elemzést használtunk. A 0.05-nél kisebb p-értéket (p < 0,05) statisztikailag szignifikánsnak tekintettük.
3. Eredmények
3.1. Az EU HPLC-elemzése
Az EUEE, EUEA és EUBu végső hozama (százalék) 4,8 százalék, 0,18 százalék, illetve 1,82 százalék volt a friss tömeg alapján. Az EU-kivonat és frakciók indikátorvegyülete, a luteolin tartalmát HPLC-vel elemezték. A standard komponens csúcsához képest a luteolin csúcsa az EU kivonatban és frakciókban igazolódott. A luteolin koncentrációja az EUEE-ben, az EUEA-ban és az EUBu-ban 499,03, 1948,05 és 994.{11}} mg/ml volt (1. ábra).
3.2. Az EU hatása az antioxidáns aktivitásra és a tirozináz gátló aktivitásra
Az EUEE, EUEA és EUBu különböző koncentrációinak antioxidáns aktivitását a DPPH/ABTS vizsgálattal mérték. Az EUEE, EUEA és EUBu DPPH és ABTS gyökfogó aktivitása dózisfüggő módon nőtt (2A, B ábra), az aszkorbinsav pozitív kontrollként. A DPPH és az ABTS gyökfogó aktivitása 50 ug/ml EU-kivonat és frakció esetén egyaránt magasabb volt, hasonló eredményeket mutatva a pozitív kontrollhoz, az aszkorbinsavhoz. A melanogenezis által közvetített enzimek gátló hatásának mérésére az EU kivonatban és frakciókban gomba tirozináz gátlási vizsgálatot végeztünk (2C. ábra) L-DOPA-val mint szubsztráttal sejtmentes körülmények között. Az eredmények azt mutatták, hogy a tirozináz aktivitást az EU kivonat és frakciói dózisfüggő módon gátolják. Különösen az 50 ug/ml EU-kivonat és frakciók tirozináz gátló aktivitása mutatott hasonló eredményeket, mint az arbutin,
Ezért az EU tirozináz gátló hatása összefügg az L-DOPA DOPA kinonná történő oxidációjával a melanogenezisben Összességében az EU frakciók nagyobb antioxidáns és tirozináz gátló hatással bírtak, mint a kivonaté. Ezenkívül az EU-frakciók, különösen az EUBu, a pozitív kontrollcsoporthoz hasonló hatásokat kezdtek mutatni 25 ug/ml dózis mellett.

2. ábra: EU antioxidáns aktivitása és gomba tirozináz gátló aktivitása. EU-kivonat és frakciók DPPH (A) és ABTS (B) gyökfogó aktivitása. Pozitív kontrollként aszkorbinsavat (2{5}} µg/ml) használtunk. A tirozináz gátló hatás EU-kivonat és frakciók L-DOPA-jával (C). Pozitív kontrollként arbutint (10 mM) használtunk. Minden grafikon a kontroll százalékos arányát mutatja, és az adatok átlag ± SEM (n=3) formában vannak kifejezve. A statisztikai szignifikancia értéke * p < 0,05, ** p < 0,01 és *** p < 0,001 az aszkorbinsav vagy arbutin csoporthoz képest.
3.3. Az EU hatása a B16-F10 sejtek életképességére
Az EU sejt citotoxicitásának felmérésére a B16-F10 melanoma sejteket különböző koncentrációjú (12,5, 25, 50 és 100 ug/ml) EU-kivonattal és frakciókkal kezeltük 24 órán át, majd a sejtek életképességét MTT vizsgálat. Az eredményeket a sejt életképességének százalékában adjuk meg a kontrollhoz viszonyítva. Az EU-kivonat és frakciók nem voltak citotoxikusak a 12.5 50 ug/mL-es B16-F10 sejtekhez viszonyított koncentrációtartományban. A citotoxicitást azonban megerősítették a B16-F10 sejtekben az EU-frakciók (EUEA és EUBu) 100 ug/ml koncentrációjában (3. ábra). Ezért a következő kísérleteket 12,5, 25 és 50 ug/ml EU-kivonat és frakciók felhasználásával végeztük.

3.4. Az EU hatása a melaninszintézisre
Az EU anti-melanogén hatásának meghatározására az EU-kivonat és frakciók melaninszintézist gátló hatását vizsgáltuk B16-F10 sejtekben. A B16-F10 sejteket 12,5, 25 és 50 µg/ml koncentrációjú EU-kivonattal és frakciókkal vagy 10 mM arbutinnal kezeltük 1 órán át, majd -MSH-val (100 mM) 72 órán át stimuláltuk. . A melanintartalom 305,44 százalékkal nőtt, ha -MSH-val stimuláltuk a kontrollhoz képest (4A. ábra). Az EU-val kezelt csoportok 50 µg/ml koncentrációban azonban szignifikánsan csökkentették a melanintartalmat a csak -MSH-val stimulált csoporthoz képest, és az eredmények hasonlóak voltak a kontrollcsoportéhoz. Ezenkívül az arbutin-pozitív kontrollhoz képest az EU-frakciók 50 µg/ml koncentrációban alacsonyabb melanintermelést mutattak. Ezekkel az eredményekkel összhangban az EU-kivonat és a frakciók koncentrációjának növekedésével a melaninszintézis gátlási aránya a B16-F10 sejtekben nőtt (4B. ábra).
Különösen a melaninszintézis gátlási aránya az EU-frakciókban 50 µg/ml koncentrációban volt szignifikánsan magasabb, mint az arbutiné. Ezért az EU-frakciók szignifikáns dózisfüggő gátló hatással voltak a melaninszintézisre B16-F10 melanomasejtekben.
3.5. Az EU hatása a melaninszintézisre és a celluláris tirozináz aktivitásra
Megerősítettük az EU kivonat és frakciók hatását a B16-F10 melanomasejtek melanogenezisének mechanizmusában szerepet játszó intracelluláris tirozináz aktivitásra. A kontroll kivételével az összes csoportot a-MSH-val (100 nM) stimuláltuk 48 órán keresztül, majd különböző koncentrációjú EU-kivonattal és frakciókkal (12,5, 25 és 50 ug/ml) vagy arbutinnal kezeltük. 10 mM) 24 órán át. Ennek eredményeként az EU-kivonat és -frakciók dózisfüggő módon szignifikánsan gátolták az MSH-indukált tirozináz aktivitást B16-F10 sejtekben (4C. ábra). Az intracelluláris tirozináz aktivitás 251,00 százalékkal nőtt, ha a-MSH-val stimuláltuk, összehasonlítva a kontrolléval. Azonban az EU-val kezelt csoportok 50 ug/ml koncentrációban szignifikánsan csökkentették a tirozináz aktivitást az a-MSHonly stimulált csoporthoz képest.
Így a tirozináz aktivitást dózisfüggő módon gátolta az EU kezelés B16-F10 sejtekben, és a hatás különösen erős volt a con. 50 ug/ml koncentrációjú. Az EUEE tirozináz aktivitásának gátlása 50 ug/ml koncentrációban alacsonyabb volt, mint az arbutin (85,13 százalék), míg az EU-frakciók (EUEA és EUBu) tirozináz aktivitásának gátlása magasabb volt, mint az arbutiné (121,99 és 128,11 százalék). , illetve). Ezekkel az eredményekkel összhangban, ahogy az EU kivonat és frakciók koncentrációja nőtt, az intracelluláris tirozináz aktivitás gátlási aránya a B16-F10 sejtekben nőtt (4D. ábra).

4. ábra: Az EU melaninszintézise és celluláris tirozináz aktivitása. EU-kivonat melanintartalma és frakciói B16-F10 melanomasejtekben (A). EU-kivonat és frakciók melaninszintézisének gátlási sebessége B16-F10 melanomasejtekben (B). EU-kivonat és frakciók intracelluláris tirozináz aktivitása B16-F10 melanomasejtekben (C). EU-kivonat és frakciók intracelluláris tirozináz aktivitásának gátlása B16-F10 melanomasejtekben (D). Az eredmények (A, C) százalékban vannak megadva az -MSH csoport alapján. Az eredmények (B, D) százalékban vannak megadva a kontrollcsoport alapján. Az adatok átlag ± SEM (n=3) formában vannak kifejezve. A statisztikai szignifikancia értéke *** p < 0,001 az -MSH-stimulált B16-F10 sejtekhez képest, és # p < 0,05, ## p < 0,01 és ### p < 0,001 a arbutin csoport.
3.6. Az EU hatása a melanogenezishez kapcsolódó CREB és ERK fehérjék expressziójára
A melanogenezis megvédi az emberi bőrt a különféle külső ingerektől, és ebben a folyamatban különböző mechanizmusok vesznek részt. Az -MSH, a melanogenezis első szakaszában szerepet játszó hormon serkenti a melanocitákat a CREB és az ERK foszforilációjára, indukálva a melanogenezishez kapcsolódó down-signal proteinek szintézisét [18]. Ebben a tanulmányban a melanogenezis által szabályozott fehérjéket, köztük a CREB-t és az ERK-t vizsgáltuk, hogy meghatározzuk az EU melanogenezist gátló mechanizmusát az -MSH-indukált melaninszintézisre B16-F10 melanomasejtekben. Ennek eredményeként megerősítettük, hogy a CREB és az ERK foszforilációja szignifikánsan megnőtt, ha a B16-F10 sejteket -MSH-val stimuláltuk. Amikor azonban a sejteket EU-kivonattal és frakciókkal kezelték, az -MSH-indukált foszforiláció dózisfüggő módon elnyomott. Konkrétan az látható, hogy az EU-kivonat és az 50 µg/ml koncentrációjú frakciók a leghatékonyabbak a különböző kezelési koncentrációk közül (5A-D ábra).

3.7. Az EU hatása a melanogenezishez kapcsolódó MITF, TRP-1, TRP-2 és tirozináz fehérjék expressziójára
Annak vizsgálatára, hogy az EU-kivonat és frakciók befolyásolják-e az -MSH által indukált melanogenezishez kapcsolódó fehérjék expresszióját, Western-blot-vizsgálatot végeztünk a MITF, TRP-1, TRP-2 és tirozináz fehérjék expressziójának felmérésére. Az összes melanogenezishez kapcsolódó fehérje szintje szignifikánsan megemelkedett -MSH-stimuláció hatására, de az EU-kivonat és frakciók hatékonyan elnyomták a MITF, TRP-1, TRP-2 és tirozináz fehérjék expresszióját az -MSH-stimulált sejtekben. B16-F10 cellák (6. ábra). A korábbi eredményekkel összhangban, különösen a legtöbb EU-kivonat és frakció esetében 50 µg/ml-nél, ezeknek a fehérjéknek az expressziója jobban gátolt, mint a pozitív kontroll arbutinnal végzett kezelés után. Ezenkívül az EU-frakciókkal végzett kezelés nagyobb hatást váltott ki azonos koncentráció mellett, mint az EU-kivonat.

6. ábra: EU gátló hatása a melanogenezishez kapcsolódó MITF, TRP-1, TRP-2 és tirozináz fehérjék expressziójára. Az EUEE (A), EUEA (B) és EUBu (C) MITF, TRP-1, TRP-2 és tirozináz reprezentatív Western-blot sávképe. A GelQuantNET program használatával a Western-blot sáv relatív intenzitása az alábbi oszlopdiagramon látható; MITF/-aktin, TRP-1/-aktin, TRP-2/-aktin és tirozináz/-aktin. -aktint alkalmaztak a Western blot belső kontrolljaként. Az adatokat átlag ± SEM (n=3) formában fejezzük ki. A statisztikai szignifikancia értéke * p < 0.05, **p < 0,01 és *** p < 0,001 az -MSH-stimulált B{-val összehasonlítva. {22}}F10 cellák.
4. Megbeszélés
A melanociták a bőr alaprétegében helyezkednek el, és a melanocitákban a melanin szintézis mértéke határozza meg az emberi bőr színét [19]. A melanin egy bőrpigment, amely védi a bőrt azáltal, hogy csökkenti a káros ultraibolya sugarak által generált ROS mennyiségét. Amikor a bőrt UV sugárzás éri, aktiválódik a melanocitákat serkentő a-MSH, és a melanociták melanint termelnek (20), A túlzott melanintermelés azonban pigmentfoltokat okozhat a bőrön, ami esztétikai problémákat okoz.
Az a-MSH melanocita receptor melanocita-specifikus melanocortin-1 receptorhoz (MC1R) történő kötődése aktiválja a jelátviteli fehérje-adenilát-ciklázt és növeli a cAMP 121 intracelluláris szintjét. A melanociták cAMP szintjének növekedésével aktiválódnak a CREB és ERK jelátviteli útvonalak, amelyek elősegítik a melanogenezisben részt vevő fehérjék termelődését. 18,22]. Ez az aktivált CREB és ERK jelátviteli útvonal fokozza az MITF expresszióját, és ezt követően elősegíti a TRP-1, TRP-2 és a tirozináz expresszióját (a 23MITF a tirozináz szabályozásának transzkripciós faktora, és központi szerepet játszik a melaninszintézis szabályozásában, beleértve a melanociták proliferációjának, differenciálódásának és túlélésének szabályozását (24). Ez a fehérje nem csak a melanogenezist szabályozza az alfehérjék szabályozásával, beleértve a TRP-1, TRP-2 és tirozinázt, de részt vesz a sejtciklus progressziójának szabályozásában is (25]. Összességében a külső stimuláció, például UV-sugárzás által okozott a-MSH-MC1R kötődés főként a CREB és ERK jelátviteli útvonalakat aktiválja a melanocitákban, ezáltal fokozza a MITF, TRP expresszióját -1, TRP-2 és tirozináz fehérjék melanin termelésének indukálására, ezért ennek a folyamatnak a gátlása a melanociták melaninszintézisének gátlását eredményezheti.
Jelenleg a különféle bőrfehérítő szerek, köztük a hidrokinon és a hidrokortizon, többnyire káros vegyszerek, és hosszú távú használatuk mellékhatásokat okozhat, beleértve a bőrirritációt és viszketést [1,26–28]. Ezért olyan biztonságos és hatékony természetes bőrfehérítő szerek kifejlesztésére kell összpontosítani, amelyek minimális mellékhatásokkal járnak, mint az EU [29].
Ebben a tanulmányban azt vizsgáltuk, hogy az EU-frakciók hogyan gátolják a melaninszintézis folyamatait és csökkentik a melanintermelést, ami bőrfehérítő hatást eredményez a B16-F10 melanomasejtekben.
Mivel az UV sugárzás okozta oxidatív stressz melanin pigmentek lerakódását idézi elő, a gyökfogó aktivitás és a ROS aktivitás gátlása hatékonyan gátolja a melanogenezist, és az ilyen antioxidáns hatással rendelkező természetes termékek kiváló fehérítő hatást fejtenek ki [30,31]. Ezért először az EU kivonat és frakciók antioxidáns aktivitását vizsgáltuk B16/F10 melanoma sejtekben DPPH és ABTS vizsgálatokkal, amelyek általános és egyszerű módszerek a növények antioxidáns aktivitásának in vitro elemzésére. A DPPH egy stabil szabad gyök, és a hidrofób vegyületek gyökfogó aktivitásának elemzésére használják redukálószerek, például aszkorbinsav és tokoferol alkalmazásával. Az ABTS-teszt képes mérni a hidrofób és hidrofil vegyületek, a láncbontó antioxidánsok és a hidrogént adományozó antioxidánsok gyökfogó aktivitását [24]. Megerősítettük az EU-kivonatok és frakciók magas DPPH és ABTS gyökfogó aktivitását. A hatások különösen 50 µg/ml koncentrációnál voltak a legerősebbek, és az EU-frakciók antioxidáns aktivitása jobb volt, mint a kivonat.
A tirozináz a melanogenezisben részt vevő fő enzim, és sok bőrfehérítő szer elsősorban tirozináz inhibitor. Ezért megvizsgáltuk az EU-frakciók hatását a melanogenezist elősegítő tirozináz aktivitásra. Megerősítettük az L-DOPA gátló hatását a celluláris tirozináz aktivitásra, hogy meghatározzuk, hogy az EU kivonat és frakciók közvetlenül gátolják-e a tirozináz aktivitást. Ennek eredményeként az EU kivonat és frakciók dózisfüggő módon fokozták a tirozináz gátló hatást. Ezenkívül a fenti eredményekkel összhangban az EU 50 µg/ml koncentrációban volt a leghatékonyabb, és az EU frakciók hatása nagyobb, mint a kivonaté. Különösen az EUBu koncentrációja (50 µg/ml) volt nagyobb hatással, mint az arbutiné, amely egy pozitív kontroll.
Ezt követően az EU-kivonat és frakciók bőrfehérítő hatását vizsgáltuk a melanogenezisre -MSH-indukált B16-F10 melanomasejtekben. Először az MTT-tesztet használtuk egy olyan koncentrációtartomány meghatározására, amelynél az EU-kivonat és frakciók nem voltak citotoxikusak a B16-F10-sejtekre. Eredményeink megerősítették, hogy a 12,5-50 µg/ml koncentráció tartományban nem volt citotoxicitás.
Miután a B16-F10 sejteket -MSH-val stimuláltuk a melanin szintézis indukálására, azonosították az EU kivonat és frakciók bőrfehérítő hatását a melanintartalomra és az intracelluláris tirozináz aktivitásra. Az EU kivonat és frakciók mintázata a melanintartalomra és az intracelluláris tirozináz aktivitásra hasonló eredményeket mutatott. Az összes EU-kivonattal és frakcióval végzett kezelés azt mutatta, hogy a melanintartalom és az intracelluláris tirozináz aktivitás dózisfüggően elnyomott. Az EU-frakciók 50 µg/ml-es koncentrációja esetén a melanintartalom és az intracelluláris tirozináz aktivitás több mint 50 százalékos csökkenése volt megfigyelhető a csak -MSH-val stimulált csoporthoz képest (4A, C ábra).
A CREB és ERK jelátviteli útvonalak a fő jelátviteli útvonalak, amelyeket a -MSH stimulációja aktivál a melanogenezisben. Ezért a CREB és az ERK, amelyek különböző mechanizmusokban vesznek részt, kulcsszerepet játszanak a melanin szintézis folyamatában. A -MSH stimulálása B16-F10 melanomasejtekben a CREB aktiválása révén növelte az MITF és a melanogenezishez kapcsolódó tirozináz géncsalád (TRP-1, TRP-2 és tirozináz) expresszióját és ERK. Ebben a tanulmányban bizonyítékot szolgáltatunk arra, hogy az EU-kivonat és frakciók gátolják a melaninszintézist, valamint az érintett upstream jelátviteli útvonalakat, a CREB-t és az ERK-t.
Amikor a TRP-1 és TRP-2 szintje megemelkedett az MITF fokozott expressziójával, a tirozináz expressziója fokozódott, és a melanogenezishez kapcsolódó enzimek melanint termeltek [18,32]. A melanogenezis által közvetített fehérjék expresszióját Western-blot módszerrel figyelték meg az EU-kivonat és frakciók anti-melanogén hatásának meghatározására B16-F10 melanomasejtekben. Eredményeink megerősítették, hogy a MITF, TRP-1, TRP-2 és tirozináz fehérjék expressziója szignifikánsan megnőtt az -MSH-stimulált csoportban.
Az EU-kivonattal és frakciókkal végzett kezelés azonban dózisfüggő módon csökkentette ezeknek a melanogenezishez kapcsolódó fehérjéknek az expresszióját. Az expresszió szignifikáns csökkenése különösen az EU-frakciók 50 µg/ml koncentrációjában volt megfigyelhető. Eredményeink azt mutatják, hogy az EU frakciók 50 µg/ml-e gátolta a MITF, egy fontos transzkripciós faktor expresszióját, jelentősen gátolva a tirozináz expressziót, és ezáltal a melanin termelést.
Ezen eredmények alapján azt találtuk, hogy 50 µg/mL EU-frakció gátolta a B16-F10 melanomasejtekben az -MSH-stimulált melanin termelést azáltal, hogy a kiváló antioxidáns hatás alapján csökkentette a melanogenezishez kapcsolódó jelátvitelt. Ezért eredményeink azt sugallják, hogy az EU-frakció potenciális jelölt lehet egy fehérítő kezelésre, amely hatékonyan szabályozza a melanogenezist.5. Következtetések
Ebben a vizsgálatban értékeltük a B16-F10 melanomasejtek -MSH-indukált melanogenezisére gyakorolt antioxidáns és anti-melanogén hatásokat, hogy megerősítsük az EU-frakciók bőrfehérítő szerek funkcióját. Összefoglalva, azt találtuk, hogy az EU-frakciók erős antioxidáns hatással rendelkeznek, és gátolják a melanogenezishez kapcsolódó fehérjéket, mint például a TRP-1, TRP-2 és a tirozinázt, az MITF szabályozásával, és ezért értékes természetes gátlói a melanogenezisnek.
Nevezetesen, az EU kivonat és frakciók koncentrációja (50 µg/ml) szükséges a melaninszintézis gátlásához az -MSH-stimulált B16F10 sejtekben. Ezenkívül megerősítettük, hogy az EU-frakciók kiváló antioxidáns és gátló hatással rendelkeznek a melanintermelésre. Következésképpen az EU hasznos lehet a bőrbetegségek kezelésére szolgáló természetes alapú terápiás szerek, valamint a kozmetikai iparban bőrfehérítő szerek tekintetében.
A szerző hozzájárulásai:
Conceptualization, J.-HL és D.-KK; Adatkezelés, BL; Formális elemzés, J.-HL; Finanszírozás megszerzése, Y.-ML; Investigation, J.-HL és Y.-DJ; Módszertan, BL, H.-WS és B.-JS; Projekt adminisztráció, Y.-ML és D.-KK; Szoftver, D.-KK; Supervision, Y.-ML és D.-KK; Vizualizáció, J.-HL; Írás – eredeti tervezet, J.-HL; Írás – áttekintés és szerkesztés, J.-HL és Y.-DJ Minden szerző elolvasta és beleegyezett a kézirat közzétett változatába.

Finanszírozás:
Ezt a kutatást a Kereskedelmi, Ipari és Energiaügyi Minisztérium (MOTIE), a Koreai Technológiai Fejlesztési Intézet (KIAT) támogatta a Gazdasági Együttműködési Régió Iparágainak Ösztönző Programja (P0004749) révén.
Összeférhetetlenség:
A szerzők kijelentik, hogy nincsenek egymással versengő érdekeik.
Minta elérhetősége:
A vegyületek mintái nem állnak rendelkezésre a szerzőktől.
Rövidítések
-MSH -melanocita-stimuláló hormon
CREB cAMP válaszelemkötő fehérje
DOPA 3,4-dihidroxifenilalanin
EU Elaeagnus umbellata
EUEE EU 70 százalékos etanol kivonat
EUEA EU etil-acetát frakció
EUBu EU butanol frakció
MC1R melanocita-specifikus melanocortin-1 receptor
MITF Microphthalmia-asszociált transzkripciós faktor
ROS Reaktív oxigénfajták
TRP tirozinázzal rokon fehérje

Hivatkozások
1. Desmedt, B.; Courselle, P.; De Beer, JO; Rogiers, V.; Grosber, M.; Deconinck, E.; De Paepe, K. A bőrfehérítő szerek áttekintése, betekintéssel az európai illegális kozmetikai piacba. J. Eur. Acad. Dermatol. Venereol. 2016, 30, 943–950. [CrossRef] [PubMed]
2. Costin, GE; Hallás, VJ Az emberi bőr pigmentációja: A melanociták a stressz hatására módosítják a bőr színét. Faseb J. 2007, 21, 976–994. [CrossRef]
3. Lin, YS; Wu, WC; Lin, SY; Hou, WC A glicin-hidroxamát gátolja a tirozináz aktivitást és a melanintartalmat a cAMP/PKA jelátviteli útvonalak leszabályozása révén. Amino Acids 2015, 47, 617–625. [CrossRef]
4. Fernandez-Garcia, E. A bőr UV-fény elleni védelme étrendi antioxidánsokkal. Étel. Funkció. 2014, 5, 1994–2003. [CrossRef]
5. Kowalska, J.; Banach, K.; Rok, J.; Beberok, A.; Rzepka, Z.; Wrze´sniok, D. A fluorokinolonok által kiváltott fototoxicitás molekuláris és biokémiai alapjai – az UV-A sugárzásnak kitett humán melanociták antioxidáns rendszerének vizsgálata. Int. J. Mol. Sci. 2020, 21, 9714. [CrossRef] [PubMed]
6. MatÉs, JM; Pérez-Gómez, C.; Castro, IND Antioxidáns enzimek és emberi betegségek. Clin. Biochem. 1999, 32, 595–603. [CrossRef]
7. Bickers, DR; Athar, M. Oxidatív stressz a bőrbetegségek patogenezisében. J. Investig. Dermatol. 2006, 126, 2565–2575. [CrossRef]
8. Kim, YJ; Uyama, H. Tirozináz inhibitorok természetes és szintetikus forrásokból: Szerkezet, gátlási mechanizmus és perspektíva a jövőre nézve. Sejt. Mol. Life Sci. 2005, 62, 1707–1723. [CrossRef]
9. Pillaiyar, T.; Manickam, M.; Namasivayam, V. Bőrfehérítő szerek: A tirozináz inhibitorok gyógyszerkémiai perspektívája. J. Enzyme Inhib. Med. Chem. 2017, 32, 403–425. [CrossRef]
10. Smit, N.; Vilanova, J.; Pavel, S. Természetes bőrfehérítő szerek vadászata. Int. J. Mol. Sci. 2009, 10, 5326–5349. [CrossRef]
11. Draelos, ZD Bőrvilágosító készítmények és a hidrokinon-vita. Dermatol. Ott. 2007, 20, 308–313. [CrossRef]
12. Anna, MI; Chiara, G.; Marinella, DL; Deborah, P.; Fabiano, C.; Nunziatina, DT; Claudia, M.; Maria, LT; Alessandra, B. Az Elaeagnus umbellata-ból izolált vegyületek antioxidáns hatása elősegíti a humán gingivális fibroblasztok jólétét. J. Nat. Prod. 2020, 83, 626–637.
13. Sabir, SM; Dilnawaz, S.; Imtiaz, A.; Hussain, M.; Kaleem, MT Az Elaeagnus umbellata (Thunb.) pakisztáni gyógynövény antibakteriális hatása. Szaúdi. Med. J. 2007, 28, 259–263.
14. Nazir, N.; Zahoor, M.; Nisar, M.; Khan, I.; Karim, N.; Abdel-Halim, H.; Ali, A. Az Elaeagnus umbellata (Thunb.) fitokémiai elemzése és antidiabetikus potenciálja streptozotocinnal kiváltott cukorbeteg patkányokban: Farmakológiai és számítási megközelítés. BMC kiegészítés. Altern. Med. 2018, 18, 332. [CrossRef]
15. Wang, SY; Bowman, L.; Ding, M. Változások a szabadgyökfogó képességben és az antiproliferatív aktivitásban az őszi olajbogyó (Elaeagnus umbellate) különböző genotípusai között. Planta. Med. 2007, 73, 468–477. [CrossRef] [PubMed]
16. Nazir, N.; Zahoor, M.; Nisar, M.; Karim, N.; Latif, A.; Ahmad, S.; Uddin, Z. Az Elaeagnus umbellate Thunb neuroprotektív és anamnesztikus hatásainak értékelése. A szkopolamin által kiváltott memóriazavarról egerekben. BMC kiegészítés. Altern. Med. 2020, 20, 143.
17. Park, SH; Jhee, KH; Yang, SA Az Elaeagnus umbellata levelek etanolos kivonatának védő hatása az -MSH által kiváltott melanintermelésre B16-F0 sejtekben és az UVB által kiváltott károsodásra CCD-986sk sejtekben. J. Life Sci. 2019, 29, 555–563.
18. Qian, W.; Liu, W.; Zhu, D.; Cao, Y.; Tang, A.; Gong, G.; Su, H. Természetes bőrfehérítő vegyületek a melanogenezis kezelésére (Review). Exp. Ott. Med. 2020, 20, 173–185. [CrossRef]
19. Gillbro, JM; Olsson, MJ A bőrvilágosító szerek melanogenezise és mechanizmusai – meglévő és új megközelítések. Int. J. Cosmet. Sci. 2011, 33, 210–221. [CrossRef]
20. Saba, E.; Kim, SH; Lee, YY; Park, CK; Ó, JW; Kim, TH; Kim, HK; Roh, SS; A Rhee, MH koreai vörös ginzeng kivonat javítja a melanogenezist az emberekben, és öregedésgátló hatást vált ki ultraibolya besugárzással kezelt szőrtelen egerekben. J. Ginseng. Res. 2020, 44, 496–505. [CrossRef] [PubMed]
21. Bertolotto, C.; Abbe, P.; Hemesath, TJ; Bille, K.; Fisher, DE; Ortonne, JP; Ballotti, R. Microphthalmia gene product as a signal transducer in cAMP-induced differentiation of melanocytes. J. Cell. Biol. 1998, 142, 827–835. [CrossRef]
22. Lee, HJ; Lee, WJ; Chang, SE; Lee, GY A heszperidin, egy népszerű antioxidáns, gátolja a melanogenezist az erk1/2 által közvetített MITF degradáción keresztül. Int. J. Mol. Sci. 2015, 16, 18384–18395. [CrossRef]
23. Price, ER; Horstmann, MA; Wells, AG; Weilbaecher, KN; Takemoto, CM; Landis, MW; Fisher, DE Az alfa-melanocitákat stimuláló hormon jelátvitel szabályozza a Waardenburg-szindrómában hiányos gén, a microphthalmia expresszióját. J. Biol. Chem. 1998, 273, 33042–33047. [CrossRef]
24. Vance, KW; Goding, CR A melanociták fejlődését és a melanomát szabályozó transzkripciós hálózat. Pigment. Sejt. Res. 2004, 17, 318–325. [CrossRef]
25. Bondurand, N.; Pingault, V.; Goerich, DE; Lemort, N.; Sock, E.; Le Caignec, C.; Wegner, M.; Goossens, M. Interaction among SOX10, PAX3 és MITF, három gén megváltozott Waardenburg-szindrómában. Zümmögés. Mol. Közönséges petymeg. 2000, 9, 1907–1917. [CrossRef]
26. McGregor, D. Hidrokinon: A rákkeltő és mutagén tulajdonságaiból származó emberi kockázatok értékelése. Crit. Rev. Toxicol. 2007, 37, 887–914. [CrossRef]
27. Kolbe, L.; Kligman, AM; Schreiner, V.; Stoudemayer, T. Kortikoszteroidok által kiváltott sorvadás és gátkárosodás nem invazív módszerekkel mérve emberi bőrön. Bőr. Res. Technol. 2001, 7, 73–77. [CrossRef] [PubMed]
28. Huang, HC; Chang, SJ; Wu, CY; Ke, HJ; Chang, TM [6]-Shogaol gátolja az -MSH által kiváltott melanogenezist az ERK és a PI3K/Akt által közvetített MITF lebomlásának felgyorsításán keresztül. Biomed. Res. Int. 2014, 2014, 842569. [CrossRef]
29. Ozen, T.; Yenigun, S.; Altun, M.; Demirtas, I. Az Elaeagnus umbellata Thunb fitokémiai összetevői, ChE-k és ureázgátlásai, antiproliferatív és antioxidáns tulajdonságai. Fésű. Chem. Magas. áteresztőképesség. Képernyő. 2017, 20, 559–578. [CrossRef]
30. Floegel, A.; Kim, DO; Chung, SJ; Koo, SI; Chun, OK ABTS/DPPH vizsgálatok összehasonlítása az antioxidáns kapacitás mérésére a népszerű antioxidánsokban gazdag amerikai élelmiszerekben. J. Food Compos. Anális. 2011, 24, 1043–1048. [CrossRef]
31. Hseu, YC; Chen, XZ; Gowrisankar, YV; Yen, HR; Chuang, JY; Yang, HL Az ektoin bőrfehérítő hatásai az -MSH-stimulált melanogenezis elnyomásán és az antioxidáns Nrf2 útvonalak aktiválásán keresztül UVA-besugárzott keratinocitákban. Antioxidánsok 2020, 9, 63. [CrossRef] [PubMed]
32. Jang, EJ; Shin, Y.; Park, HJ; Kim, D.; Jung, C.; Hong, JY; Kim, S.; Lee, SK A fitoszfingozin melanogénellenes aktivitása a mikroftalmiával összefüggő transzkripciós faktor jelátviteli útvonal modulációján keresztül. J. Dermatol. Sci. 2017, 87, 19–28. [CrossRef] [PubMed]
Ji-Hyun Lee 1,†, Bori Lee 2,†, Yong-Deok Jeon 3, Hyun-Woo Song 2, Young-Mi Lee 2, Bong-Joon Song 4 és Dae-Ki Kim 1,*
1 Department of Immunology and Institute of Medical Science, Jeonbuk National University Medical School, 20, Geonji-ro, Deokjin-gu, Jeonju-si 54907, Jeollabuk-do, Korea; jihyunsh1211@naver.com
2 Oriental Pharmacy Department, College of Pharmacy és Wonkwang-Oriental Medicines Research Institute, Wonkwang University, Iksan 54538, Jeonbuk, Korea; leebori1004@naver.com (BL); cristblack@naver.com (H.-WS); ymlee@wku.ac.kr (Y.-ML)
3 Koreai Gyógyszerészeti Tanszék, Woosuk Egyetem, 443 Samnye-ro, Samnye-up, Wanju-Gun 55338, Jeollabuk-do, Korea; ydjeon1211jh@woosuk.ac.kr
4 Department of Food Science and Biotechnology, Wonkwang University, Iksan 54538, Jeonbuk, Korea; twinf1@hanmail.net
Levelezés: daekim@jbnu.ac.kr; Tel.: plusz 82-63-2703080
Ezek a szerzők egyformán hozzájárultak ehhez a munkához.
For more information:1950477648nn@gmail.com