

MÁSODIK RÉSZ A Cistanche Deserticola poliszacharid melanogenezist indukál a melanocitákban és csökkenti az oxidatív stresszt
Mar 07, 2022
KATTINTSON IDE VISSZA AZ ELSŐ RÉSZHEZ
Kapcsolatba lépni:joanna.jia@wecistanche.com


4|MEGBESZÉLÉS ÉS KÖVETKEZTETÉSEK
Ebben a tanulmányban a CDP szerepét vizsgáltuk HEM-ekben és B16F10 sejtekben. Most először találtuk megCistanchehogy a CDP elősegítheti a melanogenezist a melanocitákban és elősegítheti a pigmentációt a zebradánban. Egy ezt követő kísérlet kimutatta, hogy a MAPK jelátviteli útvonala aktiválódott CDP-kezelés alatt. Tovább vizsgáltuk az oxidatív stresszben betöltött szerepét, és azt találtuk, hogy a CDP mérsékelheti a H2O2- által kiváltott citotoxicitást és apoptózist melanocitákban; eközben a CDP aktiválhatja az NRF2/HO-1 antioxidáns útvonalat, és megköti az intracelluláris ROS-t oxidatív stressz körülmények között.

cistanchevantirozináz inhibitor
A mitogén által aktivált protein kináz létfontosságú folyamat, amely részt vesz aCistanchea MITF, egy kulcsfontosságú transzkripciós faktor szabályozásában, amely elősegíti a melanogenezishez kapcsolódó gének expresszióját, és ezt követően befolyásolja a melaninszintézist és -transzportot.26,27 Vizsgálatunkban az ERK, JNK és p38 aktiválódása a melanocitákban szignifikánsan megnövekedett. CDP kezelés után; eközben a MITF/p-MITF és az MITF-vezérelt TYR, a TRP1, a TRP2 és a RAB27A expresszióit ennek megfelelően felfelé szabályozták. Ezért azt javasoljuk, hogy a CDP elősegítheti a melanogenezist a MAPK útvonal aktiválásával, de az, hogy a CDP hogyan aktiválja a MAPK-kat, továbbra is fennáll.Cistancheismeretlen. A legújabb tanulmányok szerint a toll-like receptor 4 (TLR4) nagymértékben expresszálódik a melanocitákban, és részt vesz a melanogenezisben.28,29 A TLR4 egy fontos transzmembrán fehérje, amely specifikusan képes megkötni a lipopoliszacharidot (LPS)30; tanulmányok arról számoltak be, hogy az LPS képes melanogenezist indukálni.29 Érdekes módon számos, növényekből vagy gombákból kivont poliszacharid aktiválta a TLR-eket és a downstream jelátviteli útvonalakat, mint például a MAPK és a nukleáris faktor kappa béta (NF-κB).31,32 Ezért azt gyanítjuk, hogy a CDP A TLR-ek felismerik és megkötik, majd aktiválja a downstream MAPK jelátviteli útvonalat, és elősegíti a melanogenezist. Ezenkívül ismert, hogy a nukleotid-kötő oligomerizációs doménszerű receptorok (NLR-ek) felismerik az intracelluláris ligandumokat, és elősegítik a MAPK és NF-κB jelátviteli útvonalak aktiválását.33,34 Amint arról beszámoltunk, a Ganoderma lucidumból és Astragalusból kivont poliszacharidok bejuthatnak a sejtekbe. és befolyásolják az NLR-eket.35,36 Így lehetséges, hogy a CDP bejuthat a melanocitákba és szabályozhatja a MAPK jelátviteli útvonalat az NLR-eken keresztül. Ennek a hipotézisnek a bizonyításához azonban további vizsgálatokra van szükség.

Egyes eddigi tanulmányok növényi poliszacharidok melanogenezisben történő alkalmazásáról számoltak be a melanintermelés gátlására.37,38 Ebben a tanulmányban azonban a CDP elősegítette a melanogenezist

melanocitákban, és ezt a hatást az -MSH-val való összehasonlítás után is megerősítették. A CDP egyfajta gyógynövényekből kivont poliszacharid is, gyanítjuk, hogy a CDP ellentétes hatása a CDP és más poliszacharidok közötti szerkezeti különbségekkel hozható összefüggésbe. A poliszacharidok monoszacharidok polimerizációjával képződnek, de a monoszacharid típus, a monoszacharid összetétel, a glikozidos kötés, az oldallánc szerkezete és a molekulatömeg tekintetében változó 39,40; úgy gondolják, hogy ezek a tényezők határozzák meg biológiai funkcióikat.41 A meglévő tanulmányok javasolták a CDP szerkezetét, és azt sugallták, hogy a CDP szerkezete ezt követően befolyásolja a funkcióját.42 Így további bizonyítékokra van szükség a CDP teljes megértéséhez és hipotézisünk megerősítéséhez.
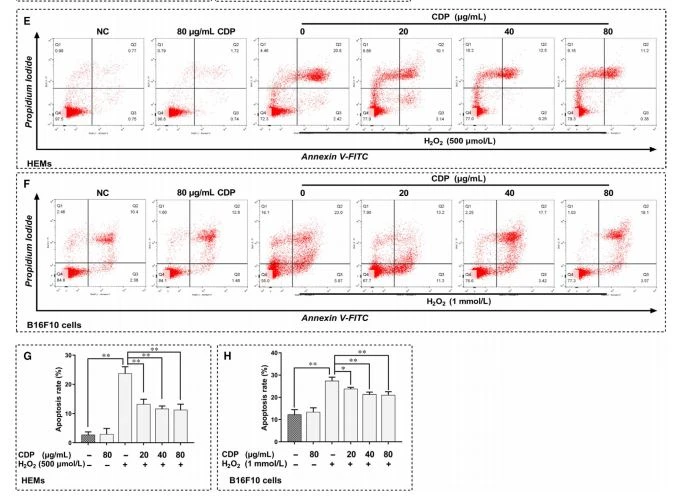
A melanogenezis az ellenállás egyik fontos védőmechanizmusaCistancheultraibolya károsodás és a test homeosztázisának fenntartása43; ugyanakkor a melanociták könnyen ki vannak téve olyan kedvezőtlen környezeteknek, mint például a ROS-túlterhelés.11 Ismeretes, hogy a ROS részt vesz a melanogenezis elősegítésében, az egyik mechanizmus a MAPK-ok aktiválása.44 A vizsgálatok azonban azt is kimutatták, hogy ez a hatás csak egy bizonyos ROS-on belül létezik. szinten, míg a ROS túlterhelés szignifikánsan rontja a melanogenezist.45 A ROS, a MAPK és a melanogenezis közötti kapcsolat különböző körülmények között változó, ezért nyilvánvalóan fontos a pro- és antioxidáns rendszerek egyensúlya. Depigmentációs betegségekben, mint például a vitiligo, a kiegyensúlyozatlan antioxidáns rendszer és az ellenőrizhetetlen ROS-túlterhelés károsítja a melanocitákat és csökkenti a sejtek életképességét.11,46 Ebben a vizsgálatban különböző H2O2-koncentrációkat használtunk a sejtek ROS-túlterhelésének szimulálására, és a HEM-ek gyengébb toleranciát mutattak az ellen. H2O2, mint a B16F10 sejtek. Amikor a melanocitákat H2O2-kezelésnek vetettük alá, életképességük és apoptózisuk aránya romlott, de

Fenil-etanol Glikozidokcistanche kannábangyulladáscsökkentő
A CDP előkezelés részben megfordíthatja a tendenciát. Ezzel egyidőben a ROS-t is feldúlták. Amint arról beszámoltunk, az NRF2/ARE antioxidációs útvonal aktiválása a bőrsejtekben a ROS megkötésének egyik fő módszere.14 Kísérleteinkben az NRF2 és a HO-1 fehérjeszintje a melanocitákban megemelkedett a CDP nélküli H2O2 kezelés után; ez azt jelenti, hogy a H2O2-indukált oxidatív stressz aktiválhatja az NRF2/HO-1 útvonalat, de nem elegendő a redox egyensúly fenntartásához és a sejt sérülésektől való megvédéséhez. A CDP előkezelés azonban javította az NRF2/HO-1 antioxidációs útvonalat, és helyreállította az egyensúlyt. Ezért azt javasoljuk, hogy a CDP megvédje a melanocitákat az oxidatív stressz okozta sérülésektől az NRF2/HO-1 antioxidációs útvonal aktiválásával és a ROS megkötésével.
Megállapítottuk, hogy a CDP-kezelés önmagában nincs hatással a melanociták ROS-ére vagy NRF2/HO-1-ra. Ez az eredmény arra utal, hogy a CDP befolyásolhatja a redox egyensúlyt oxidatív stressz esetén, de nem normál körülmények között. Ezenkívül az NRF2/HO-1 antioxidációs útvonalat a jelentések szerint a PI3K, NF-κB és MAPK jelátviteli útvonalak szabályozzák.47,48 Vizsgálatunkban a CDP képes volt aktiválni a MAPK jelátviteli útvonalat. Lehetséges, hogy a CDP aktiválhatja az NRF2/HO-1 útvonalat a felfelé szabályozó MAPK-kon keresztül. Amint Slominski beszámolt róla, a melanociták stressz-érzékelők, amelyek egy szabályozó hálózatban vesznek részt, és funkcióik gyorsan változhatnak a környezet hatására.49 Azt javasoljuk, hogy a CDP szerepét a melanociták állapota befolyásolja, elősegítheti a melanogenezist anélkül, hogy az antioxidánsra hatással lenne. rendszer normál körülmények között, de helyreállítja a redox egyensúlyt oxidatív stressz körülmények között. Ezért a melanociták működését és túlélését a CDP két különböző módon tudja fenntartani. A CDP segít a melanocitáknak fenntartani a homeosztázist, ami szintén fontos funkciója a melanogenezisnek.50,51
Összefoglalva, a CDP elősegítheti a melanociták melanogenezisét
a MAPK jelátviteli útvonal aktiválásával. A CDP javíthatja a melanociták túlélését az NRF2/HO-1 antioxidáns útvonal aktiválásával és az intracelluláris ROS megkötésével oxidatív stressz körülmények között. Eredményeink jelentőségteljesek, mert azt mutatják, hogy a CDP elősegítheti a melanogenezist és megvédheti a melanocitákat az oxidatív stressz sérülésétől, amely valószínűleg felelős a melanociták működési zavaráért és elvesztéséért. A tanulmány eredményei azt mutatják, hogy a CDP új gyógyszer lehet a depigmentációs betegségek kezelésében.

cistanchefehérítő hatása a bőrre, hogyantioxidáns
KÖSZÖNETNYILVÁNÍTÁS
Ezt a munkát a Kínai Nemzeti Természettudományi Alapítvány (81703101. sz.), a Közép-Dél Egyetem Harmadik Xiangya Kórházának New Xiangya Talent Projects (JY201623 és No. 20170301), Hunan tartomány Természettudományi Alapítványa (No. sz. 2018JJ3788 és 2018JJ3793) és a Project of Hunan Health Commission (No. C2019173). Dr. Yibo Hu elvégezte a tanulmány fő részét és megírta a kéziratot; Jing Chen professzor és Qinghai Zeng tervezték a tanulmányt és irányították a kéziratírást; Jinhua Huang, Lihua Huang és Hong Xiang professzor technikai támogatást nyújtott és elemezte az adatokat; Dr. Yixiao Li, Ling Jiang, Yujie Ouyang, Yumeng Li, Lun Yang és Xiaojiao Zhao hozzájárultak a kísérletek egy részéhez.
ÉRDEKÜLÉKENYSÉG
A szerzők megerősítik, hogy nem áll fenn összeférhetetlenség.
AZ ADATOK ELÉRHETŐSÉGÉRE VONATKOZÓ NYILATKOZAT
A tanulmány megállapításait alátámasztó adatok ésszerű kérésre elérhetők a megfelelő szerzőtől.
IRODALOM
1. Bleuel R, Eberlein B. A vitiligo terápiás kezelése. J Dtsch Dermatol Ges. 2018;16:1309-1313.
2. Taieb A, Meurant JM. Előnyben kell részesítenünk a pszichológiai beavatkozásokat a vitiligo kezelésében? J Eur Acad Dermatol Venereol. 2018;32:2053-2054.
3. Picardo M, Dell'Anna ML, Ezzedine K és mtsai. Vitiligo. Nat Rev Dis alapozók. 2015;1:15011.
4. Slominski A, Tobin DJ, Shibahara S, Wortsman J. Melanin pigmentáció emlős bőrben és hormonális szabályozása. Physiol Rev. 2004;84:1155-1228.
5. Slominski A, Zmijewski MA, Pawelek J. L-tirozin és L-dihidroxifenilalanin, mint a melanocitafunkciók hormonszerű szabályozói. Pigment Cell Melanoma Res. 2012;25:14-27.
6. Spritz RA. Közös genetikai kapcsolatok a generalizált vitiligo és az autoimmun pajzsmirigybetegség hátterében. Pajzsmirigy. 2010;20:745-754.
7. Lin X, Tang LY, Fu WW, Kang KF. Gyermekkori vitiligo Kínában: klinikai profilok és immunológiai leletek 620 esetben. Am J Clin Dermatol. 2011;12:277-281.
8. Boehncke WH, Brembilla NC. Autoreaktív T-limfociták gyulladásos bőrbetegségekben. Front Immunol. 2019;10:1198.
9. Iannella G, Greco A, Didona D és mtsai. Vitiligo: patogenezis, klinikai változatok és kezelési megközelítések. Autoimmun Rev. 2016;15:335-343.
10. Forrester SJ, Kikuchi DS, Hernandes MS és mtsai. Reaktív oxigénfajták a metabolikus és gyulladásos jelátvitelben. Circ Res. 2018;122:877-902.
11. Denat L, Kadekaro AL, Marrot L et al. A melanociták, mint az oxidatív stressz felbujtói és áldozatai. J Invest Dermatol. 2014;134:1512-1518.
12. Qiu L, Song Z, Setaluri V. Oxidatív stressz és vitiligo: az Nrf{1}}ARE jelzőkapcsolat. J Invest Dermatol. 2014;134:2074-2076.
13. Hayes JD, Dinkova-Kostova AT. Az Nrf2 szabályozó hálózat interfészt biztosít a redox és a közvetítő anyagcsere között. Trends Biochem Sci. 2014;39:199-218.
14. Marrot L, Jones C, Perez P, Meunier JR. Az Nrf2 útvonal jelentősége a (fotó)-oxidatív stresszválaszban az emberi epidermisz melanocitáiban és keratinocitáiban. Pigment Cell Melanoma Res. 2008;21:79-88.
15. van Geel N, Speeckaert R, Mollet I és munkatársai. In vivo vitiligo indukciós és terápiás modell: kettős vak, randomizált klinikai vizsgálat. Pigment Cell Melanoma Res. 2012;25:57-65.
16. Nicolaidou E, Antoniou C, Stratigos A, Katsambas AD. Keskeny sávú ultraibolya B fényterápia és 308-nm-es excimer lézer a vitiligo kezelésében: áttekintés. J Am Acad Dermatol. 2009;60:470-477.
17. Novak Z, Bonis B, Baltas E et al. A xenon-klorid ultraibolya B lézer hatékonyabb a pikkelysömör kezelésében és a T-sejt apoptózis indukálásában, mint a keskeny sávú ultraibolya B. J Photochem Photobiol B Biol. 2002;67:32-38.
18. Xu P, Su S, Tan C és mtsai. Az Eclipse herba, a Polygoni multiflora radix preparator és a Rehmanniae radix preparator vizes kivonatainak hatása a melanogenezisre és az emberi melanociták migrációjára. J Ethnopharmacol. 2017;195:89-95.
19. Wang T, Zhang X, Xie W.Cistanche deserticolaYC Ma, "Sivatagi ginseng": áttekintés. Am J Chin Med. 2012;40:1123-1141.
20. Guo Y, Cao L, Zhao Q és mtsai. Előzetes jellemzések, a poliszacharid antioxidáns és májvédő hatásárólCistanche deserticola. Int J Biol Macromol. 2016;93:678-685.
21. Cai RL, Yang MH, Shi Y és mtsai. A feniletanoidban gazdag kivonat fáradtságcsökkentő hatásaCistanche deserticola. Phytother Res. 2010;24:313-315.
22. Zhang H, Xiang Z, Duan X és mtsai. Az oligoszacharidok daganatellenes és gyulladáscsökkentő hatásai aCistanche deserticolakivonat a gerincvelő sérülésére. Int J Biol Macromol. 2019;124:360-367.
23. Liu Y, Wang H, Yang M és mtsai.Cistanche deserticolaA poliszacharidok megvédik a PC12 sejteket az OGD/RP által kiváltott sérülésektől. Biomed Pharmacother. 2018;99:671-680.
24. D dal, Cao Z, Liu Z és mások.Cistanche deserticolaA poliszacharid gyengíti az oszteoklasztogenezist és a csontreszorpciót azáltal, hogy gátolja a RANKL jelátvitelt és a reaktív oxigénfajok termelését. J Cell Physiol. 2018;233:9674-9684.
25. Fu C, Chen J, Lu J és mtsai. A TUG1 downregulációja elősegíti a melanogenezist és az UVB által kiváltott melanogenezist. Exp Dermatol. 2019;28:730-733.
26. Johannessen CM, Johnson LA, Piccioni F, et al. A melanocita származási program rezisztenciát biztosít a MAP kináz út gátlásával szemben. Természet. 2013;504:138-142.
27. Vachtenheim J, Borovansky J. A melanociták pigmentképződésének „átírási fiziológiája”: az MITF központi szerepe. Exp Dermatol. 2010;19:617-627.
28. Yu N, Zhang S, Zuo F és mtsai. A tenyésztett humán melanociták a 2–4., 7. és 9. funkcionális toll-szerű receptorokat expresszálják. J Dermatol Sci. 2009;56:113-120.
29. Ahn JH, Park TJ, Jin SH, Kang HY. A humán melanociták funkcionális Toll-szerű receptort expresszálnak 4. Exp Dermatol. 2008;17:412-417.
30. Reed SG, Carter D, Casper C és mtsai. A GLA család adjuvánsok aktivitásának összefüggései. Semin Immunol. 2018;39:22-29.
31. Guo MZ, Meng M, Feng CC és társai. A Craterellus cornucopioides-ból nyert új poliszacharid a TLR4-NF-kappaB útvonal szabályozásán keresztül fokozza az immunmoduláló aktivitást immunszuppresszív egérmodellekben. Élelmiszer funkció. 2019;10(8):4792-4801.
32. Wei W, Xiao HT, Bao WR és mtsai. A TLR-4 közvetítheti a RAW264.7 sejtek Astragalus poliszacharid RAP által indukált citokin expressziójának jelátviteli útvonalait. J Ethnopharmacol. 2016;179:243-252.
33. Chen H, Yang D, Han F és mtsai. A bakteriális T6SS effektor EvpP megakadályozza az NLRP3 gyulladásos aktivációját azáltal, hogy gátolja a Ca(2 plusz)-függő MAPK-Jnk útvonalat. Sejtgazda mikroba. 2017;21:47-58.
34. Levy M, Shapiro H, Thaiss CA, Elinav E. NLRP6: a sokoldalú in-Nate immune sensor. Trends Immunol. 2017;38:248-260.
35. Chen YS, Chen QZ, Wang ZJ, Hua C. Ganoderma lucidum poliszacharidok gyulladásgátló és hepatoprotektív hatásai szén-tetraklorid által kiváltott májkárosodás ellen Kunming egerekben. Gyógyszertan. 2019;103:143-150.
36. Tian Z, Liu Y, Yang B és társai. Az Astragalus poliszacharid az NLRP3 gyulladásos gátlásán keresztül gyengíti az egér vastagbélgyulladását. Planta Med. 2017;83:70-77.
37. Jiang L, Huang J, Lu J és munkatársai. A Ganoderma lucidum poliszacharid csökkenti a melanogenezist azáltal, hogy gátolja a keratinociták és fibroblasztok parakrin hatását az IL-6/STAT3/FGF2 útvonalon keresztül. J Cell Physiol. 2019;234:22799-22808.
38. Cai ZN, Li W, Mehmood S és mtsai. A Morchella esculenta-ból származó FMP{1}} poliszacharid hatása a melanogenezisre B16F10 sejtekben és zebrahalban. Élelmiszer funkció. 2018;9:5007-5015.
39. Zhang C, Li Z, Zhang CY és mtsai. A lucernából (Medicago sativa L.) származó poliszacharidok molekuláris jellemzői és bioaktivitása. Tápanyagok. 2019;11:1181.
40. Coconi Linares N, Di Falco M, Benoit-Gelber I, et al. A nyomelemek jelenléte jelentősen kiszélesíti az Aspergillus niger guargumira adott molekuláris válaszát. Új Biotechnol. 2019;51:57-66.
41. Ma H, Zhang K, Jiang Q és mtsai. Dendrobium officinale növényi poliszacharidjainak jellemzése többszörös kromatográfiás és tömegspektrometriás technikákkal. J Chromatogr A. 2018;1547:29-36.
42. Dong Q, Yao J, Fang JN, Ding K. Két hideg vízzel extrahálható poliszacharid szerkezeti jellemzése és immunológiai aktivitásaCistanche deserticolaYC Ma. Carbohydr Res. 2007;342:1343-1349.
43. Slominski AT, Zmijewski MA, Plonka PM, et al. Hogyan érinti az UV fény az agyat és az endokrin rendszert a bőrön keresztül, és miért. Endokrinológia. 2018;159:1992-2007.
44. Schalke S. Új adatok a hiperpigmentációs rendellenességekről. J Eur Acad Dermatol Venereol. 2017;31 (5. melléklet):18-21.
45. Glassman SJ. Vitiligo, reaktív oxigénfajták és T-sejtek. Clin Sci. 2011;120:99-120.
46. Ristow M. Az igazság feltárása az antioxidánsokról: a mitohormézis megmagyarázza a ROS által kiváltott egészségügyi előnyöket. Nat Med. 2014;20:709-711.
47. Balogun E, Hoque M, Gong P és társai. A kurkumin aktiválja a hem oxigenáz-1 gént az Nrf2 és az antioxidánsokra reagáló elem szabályozásán keresztül. Biochem J. 2003;371:887-895.
48. Paine A, Eiz-Vesper B, Blasczyk R, Immenschuh S. Signaling to hem oxigenase-1 and its gyulladásgátló terápiás potenciál. Biochem Pharmacol. 2010;80:1895-1903.
49. Slominski A, Paus R, Schadendorf D. A melanociták mint "érzékszervi" és szabályozó sejtek az epidermiszben. J Theor Biol. 1993;164:103-120.
50. Slominski RM, Zmijewski MA, Slominski AT. A melanin pigment szerepe a melanomában. Exp Dermatol. 2015;24:258-259.
51. Slominski A, Kim TK, Brozyna AA és mtsai. A melanogenezis szerepe a melanoma viselkedésének szabályozásában: a melanogenezis stimulálja a HIF-1alfa expressziót és a HIF-függő kísérőutakat. Arch Biochem Biophys. 2014;563:79-93.


