A Herba Cistanche-ból származó fenil-etanol-glikozidok javítják a hipoxiás daganat mikrokörnyezetét, és fokozzák az oxaliplatin hatásait a HIF-1 jelátviteli útvonalon keresztül
Feb 26, 2022
További információért forduljon Tináhoztina.xiang@wecistanche.com
Absztrakt. MájrákA rosszindulatú daganatok egyik leggyakoribb típusa, magas malignitás, gyors progresszió, magas morbiditás és mortalitás jellemzi. Az oxaliplatinról (OXA) jelentős hatékonyságot mutattak ki a fejlettekkel szembenmájrákelviselhető toxicitással. Szilárd daganatokban a hipoxiás mikrokörnyezet elősegíti az epiteliális-mezenchimális átmenetet (EMT), ami szintén előidézheti a májrák gyógyszerrezisztenciáját a platina gyógyszerekkel szemben. Herba Cistanche (Cistanche tubulosa) gyakran alkalmazták a hagyományos kínai orvoslásban és afenil-etanolglikozidoktól tőlHerba Cistanche(CPhG-k) a fő aktív komponensek. Jelen tanulmány célja a CPhG-k hatásának vizsgálata volt a májráksejtek életképességére, apoptózisára, migrációjára és inváziójára. A HepG2 májráksejteket a kontroll, DMSO, CoCl2, OXA, OXA plusz CoCl2 és CPhGs plusz OXA plusz CoCl2 csoportokra osztották. Ezt követően reverz transzkripciós-kvantitatív PCR-t és Western blot analízist végeztek a hipoxia-indukálható 1-es faktor (HIF-1), a lizil-oxidáz-szerű 2-es (LOXL2), valamint az EMT-vel kapcsolatos gének és fehérjék (azaz E) expressziós szintjének meghatározására. -cadherin és Twist), hogy megvizsgálják a CPhG-k májrákra gyakorolt hatását. Az eredmények azt mutatták, hogy a CPhG-k fokozhatják az OXA májrákra gyakorolt hatását, és gátolhatják a májráksejtek migrációját, invázióját és apoptotikus sebességét. Ezenkívül a CPhG-kezelés hatékonyan indukálta a HIF-1, LOXL2 és Twist leszabályozását, valamint az E-cadherin felszabályozását. A jelenlegi eredmények azt mutatták, hogy a CPhG-k a HIF-1 jelátviteli útvonal gátlásával jelentős mértékben növelték az OXA-val szembeni érzékenységet és elnyomták a hipoxia által kiváltott EMT-t májrákban. Ezért a CPhG-k hatékony platina gyógyszerszenzibilizátornak tekinthetők, amely javíthatja a kemoterápiás hatékonyságot májrákos betegeknél.

Bevezetés
Májrákegy rosszindulatú daganat, amely általában az emésztőrendszert érinti, és elsődleges és másodlagos típusokból áll. Elsődlegesmájrák is divided into hepatocellular carcinoma and intrahepatic cholangiocarcinoma (1,2). Notably, liver cancer is associated with a high incidence and mortality rate worldwide (3). According to the World Health Organization, it is predicted that there will be >2030-ra 1,000,000 májrákkal összefüggő haláleset, és az újonnan igazolt esetek 46,6 százalékát a szárazföldi Kínában okozzák majd.
Az oxaliplatinról (OXA) számoltak be, hogy gátló hatást fejt ki a májrák növekedésére, klinikai körülmények között tolerálható toxicitás mellett. Mindazonáltal a platinaalapú gyógyszeres terápia általános hatékonyságát gátolja a daganatsejtek rezisztenciája (4). Köztudott, hogy a májrák kevésbé érzékeny a kemoterápiára, mint más típusú rák. A májrák több gyógyszerrel szembeni rezisztenciája hozzájárult számos terápiás szerrel szembeni rezisztenciához (5). Egy korábbi tanulmányban Xie és Zhong (6) arról számolt beHepG2 sejtekalacsony érzékenységet mutatott az adriamicinre, 5-fluorouracilra és ciszplatinra hipoxiás körülmények között. Annak ellenére, hogy a platina alapú kemoterápiás szerek jelentik a rák fő kezelési lehetőségeit, a betegek körében fennáll ezekkel a gyógyszerekkel szembeni rezisztencia. Továbbá a májrákos betegek prognózisa továbbra is rossz (7,8). A mai napig kiterjedt erőfeszítéseket tettek a gyógyszerrezisztencia vizsgálatára és a májrákos betegek gyógyszerérzékenységének javítására.
Hipoxiás körülmények között revaszkularizáció megy végbe a rákos sejtekben, ami epitheliális-mezenchimális átmenethez (EMT) és vaszkuláris mimikrihez (VM) vezethet. Az EMT és a VM ezt követően elősegítheti az inváziót és a távoli metasztázisokat. Ezen túlmenően az EMT-ről azt feltételezik, hogy a rák progressziójának hajtóerejeként szolgál (9). Ezen túlmenően a hipoxia-indukálható faktorok (HIF-ek) szerepet játszanak a neoerek képződésében, az energia-anyagcserében, a sejtproliferációban, az invázióban és a metasztázisban (10).
A lizil-oxidáz (LOX)-szerű 2 (LOXL2) fehérje a LOX család tagja, és szorosan kapcsolódik a kollagén és az elasztin kovalens térhálósodásához, ami fibrózishoz vezethet, és kulcsfontosságú az extracelluláris mátrix integritása szempontjából. 11). Egy korábbi tanulmányban a LOXL2-t a rákos sejtek metasztázisával szoros kapcsolatban állónak tartották (12). Ezenkívül kimutatták, hogy a LOXL2 számos rosszindulatú rák patogenezisét és progresszióját modulálja extra- és intracelluláris útvonalakon keresztül, amelyek fontos mutatói voltak a rossz prognózis értékelésének (13, 14).
Herba Cistancheegy sivatagi régiókban elterjedt tonizáló gyógynövény, amelyet gyakran használnak a hagyományos kínai orvoslásban (15,16).Cistanche tubulosa(C. tubulosa) egy természetes gyógynövény, amelyet általában Xinjiang autonóm régióban ültetnek. A Herba Cistanche fenil-etanol-glikozidjai (CPhG-k) a Herba Cistanche egyik fő aktív összetevőjeként szolgálnak. Korábban Hu és munkatársai (17) jelezték, hogy a CPhG-k mérsékelhetik a májkárosodást H22-tumort hordozó egerekben, és gátolhatják a rákos sejtek növekedését. Feltételezték, hogy a mögöttes mechanizmus a szérum-fetoprotein csökkenésével hozható összefüggésbe, és fokozhatja az egerek immunitását.
Jelen tanulmányban egy hipoxiás modell aHepG2májráksejteket CoCl2-vel indukáltunk. Ezen az alapon jelen tanulmány célja az OXA hatásának vizsgálata volt a rákos sejtek proliferációjára, apoptózisára, migrációjára és inváziójára CPhG-k jelenlétében, hipoxiás körülmények között. Ezenkívül kimutatták a HIF-1, LOXL2, E-cadherin és Twist mRNS- és fehérje expressziós szintjét. Ezenkívül megvizsgálták a CPhG-k májrák patogenezisére gyakorolt hatásának pontos mechanizmusait.

Anyagok és metódusok
Sejtvonal. Az STR-módszerrel azonosított HepG2 májrák sejtvonalat a Hszincsiangi Orvostudományi Egyetem (Urumcsi, Kína) első társkórházának klinikai kutatóintézete biztosította. A sejteket 10% magzati borjúszérumot (FBS; Hyclone; Cytiva) tartalmazó magas glükóztartalmú DMEM-ben (HyClone; Cytiva) tenyésztettük 37 °C-on, 5% CO2-t tartalmazó inkubátorban.
CPhG-k készítése. C. tubulosa extraction (CPhGs) was obtained from Hetian Dichen Biotech Co., Ltd. The content of CPhGs was >80 százaléka, ezen belül az echinakozid és a verbaszkóz tartalom 44,5 és 16,1 százalék volt. A C. tubulosa (Schrenk) Wight szárait 2016 októberében gyűjtötték a kínai Hszincsiangból. A növényt Dr. Junping Hu azonosította. Mindezeket az utalványmintákat (szám: 201610) a Hszincsiangi Orvostudományi Egyetem, Hszincsiangi Orvostudományi Egyetem Plant Herbariumában helyezték letétbe.
Kísérleti terv. HepG2 sejtek(5x10⁴/ml) különböző koncentrációjú CPhG-kkel (5, 25, 50, 100, 200 és 500 ug/ml) kezeltük 48 órán keresztül 37 °C-on (24 órával az oltás után) a CPhGs-L/M/ szűrés céljából. H adag.HepG2 sejtek(5x10⁴/ml) a következő csoportokra osztották: i) Kontrollcsoport, magas glükóztartalmú DMEM-ben tenyésztett; ii) DMSO-csoport, 0,1% DMSO-ban (v/v) tenyésztve; iii) CoCl2-csoport (hipoxiás modellcsoport), 100 μM CoCl2-t tartalmazó szérummentes DMEM-ben tenyésztve; iv) OXA csoport (pozitív kontrollcsoport), 5 μM OXA-ban tenyésztve (Beijing Solarbio Science & Technology Co., Ltd.); v) OXA plusz CoCl2 csoport, 5 μM OXA-ban tenyésztve 100 μM CoCl2-vel kombinálva; és vi) CPhGs-csoportok, amelyeket CPhGs-L/M/H-val (25, 50 és 100 ug/ml) kezeltek 5 μM OXA-val és 100 μM CoCl2-vel kombinálva.
Sejtéletképességi vizsgálat. A sejtek életképességét Cell Counting Kit-8 (CCK-8) vizsgálattal határoztuk meg a gyártó utasításai szerint (Beijing Solarbio Science & Technology Co., Ltd.) és a korábban leírtak szerint (18). A sejteket (2,{4}}x103 sejt/lyuk) 96 lyukú lemezekre oltottuk. Ezt követően, ~24 órával az oltás után, a sejteket 48 órán át kezeltük az egyes csoportok kezelési körülményeinek megfelelően. A táptalajt ezután 100 ul magas glükóztartalmú DMEM-re cseréltük, majd 10 ul CCK-8 reagenst adtunk hozzá; a sejteket 1 órán át 37 °C-on inkubáltuk. Az optikai sűrűséget egy többszörös detektálású mikrolemez-leolvasóval (Thermo Fisher Scientific, Inc.) mértük 450 nm-en. Minden állapothoz hat ismétlést készítettünk.
Az apoptotikus ráta meghatározása. Az apoptotikus sebességet Annexin V/PI Apoptotic Detection Kit (Beijing Solarbio Science & Technology Co., Ltd.) segítségével határoztuk meg. HepG2 sejteket (5x10⁵) oltottunk be 6 lyukú lemezekre 37 °C-on 5 százalékos CO2-tartalom mellett. Ezt követően ~ 24 órával a kezelés után a sejteket szérummentes DMEM-ben tenyésztettük 4 órán át. A sejteket ezután 0,25%-os tripszinnel emésztjük (Gibco; Thermo Fisher Scientific, Inc.), majd legalább háromszor mossuk előhűtött PBS-sel. 167,7 xg-vel, 5 percig 4 °C-on végzett centrifugálással a sejteket 1X kötőpufferrel újraszuszpendáltuk, és a koncentrációt 1-5 x 10⁶/ml-re állítottuk be, majd 5 ul Annexin V-FITC-vel és 5 ul PI-vel festettük 15 percig. szobahőmérsékleten. A sejteket ezután áramlási citometriának vetették alá BD LSRFortessa áramlási citométer (BD Biosciences) és FlowJo 10.6.2 szoftver (Tree Star, Inc.) segítségével.
Sebgyógyulási vizsgálat. A CPhG-k sejtmigrációra gyakorolt gátló hatását sebgyógyulási teszttel vizsgálták (19). A sejteket 6 lyukú lemezekre oltottuk, amíg 100 százalékos összefolyó egyrétegű réteget nem kaptunk. Ezt követően a sejteket 200 ul-es pipettahegy segítségével megsebesítettük, PBS-sel mostuk, és szérummentes tápközegben végzett kezelésekkel inkubáltuk. A gyógyszeres kezelést követően a sebgyógyulási sebességet 0, 12, 24 és 48 óránál mérték. A sebképeket fluoreszcens mikroszkóppal (Nikon Ti-S, Japán) 10-szeres nagyítás mellett készítettük. A sebzáródást minden periódusban a seb távolságával mértük, és a kezdeti sebtávolság százalékában fejeztük ki 0 óránál.
Transwell vizsgálatok. A sejtinváziót Transwell esszékkel értékeltük. A sejteket (1x10⁵ sejt/ml) 200 ul magas glükóztartalmú DMEM-ben szuszpendáltuk FBS nélkül. A sejteket ezután polietilén-tereftalát szűrőmembránnal (pórusméret, 8,0 μm) borított, Matrigel-bevonatú felső lyukakba oltottuk. Összesen 500 ul magas glükóz tartalmú DMEM-et, amely 10% FBS-t tartalmazott, helyeztünk az alsó kamrába. Vatta törlőkendővel távolítottuk el a sejteket a szűrő felső felületéről 48 óra elteltével 37 °C-on. A membránon áthatoló sejteket 4 százalékos paraformaldehiddel rögzítettük 30 percig. Ezt követően a sejteket 0,1 százalékos kristályibolyával festettük 15 percig szobahőmérsékleten. A behatoló sejteket fluoreszcens mikroszkóp alatt (Nikon Ti-S) figyelték meg 100-szoros nagyítással.

Reverz transzkripciós-kvantitatív PCR (RT-qPCR). A teljes RNS-t a HepG2 sejtekből TRIzol® reagenssel (Invitrogen; Thermo Fisher Scientific, Inc.) extraháltuk, a cDNS szintézist pedig PrimeScript RT reagenskészlettel (Takara Bio, Inc.) végeztük a gyártó protokollja szerint. A qPCR-t 7500 valós idejű PCR rendszeren (Applied Biosystems; Thermo Fisher Scientific, Inc.) hajtottuk végre TB green™ Premix Ex Taq™ (Takara Bio, Inc.) használatával a gyártó protokollja szerint. A qPCR-hez használt primerek az I. táblázatban vannak felsorolva. A PCR körülményei 95 °C-on 30 másodpercig tartó denaturálásból, majd 40 ciklusból 95 °C-on 5 másodpercig tartó denaturálásból és 30 másodpercig 60 °C-on végzett annealingból álltak. Végül az amplifikációs eredményeket a 2-ΔΔCq módszerrel elemeztük (20).
Western blot analízis. A 48 órán keresztül kezelt sejtekből a fehérjéket proteázt és foszfatáz inhibitorokat tartalmazó RIPA lízispufferben (Thermo Fisher Scientific, Inc.) végzett homogenizálással extraháltuk. A sejtek fehérjetartalmát BCA módszerrel határoztuk meg. A fehérjéket (4{33}} ug) ezután SDS-PAGE-val választottuk el 10%-os gélen, és PVDF membránra vitték át. A membránt 5 százalékos zsírmentes tejben blokkoltuk 1 órán át 4 °C-on, és a következő elsődleges antitestekkel inkubáltuk: -aktin (1:5, 000; kat. sz. bs‑0061R; BIOSS), HIF -1 (1:1,000; kat. sz. ab179483; Abcam), LOXL2 (1:500; kat. sz. ab179810; Abcam), E-cadherin (1:1, 000 kat. sz. bs-10009R; BIOSS) és Twist1 (1:500; kat. sz. bs-2441R; BIOSS) egy éjszakán át 4°C-on. A membránt ezután kecske anti-nyúl IgG H&L másodlagos antitestekkel (1:2000; katalógusszám ab205718; Abcam) inkubáltuk 4 órán át szobahőmérsékleten. TBS-0,05% Tween-20-zal történő mosás után a blotokat Enhanced Chemiluminescence System (Amersham; Cytiva) segítségével tettük láthatóvá. A sávok relatív intenzitását az ImageJ2x szoftverrel (2.1.4.7 verzió; Rawak Software Inc.) denzitometriás analízissel félig számszerűsítettük, és az eredmények denzitometriás diagramjait az -aktin intenzitására normalizáltuk.
Statisztikai analízis. Az adatok elemzéséhez az SPSS 19.{1}} szoftvert (SPSS, Inc.) használtuk. Az adatokat átlag ± standard deviáció formájában mutatjuk be, és egyutas ANOVA-val, majd Tukey post hoc teszttel elemeztük. P<0.05 was="" considered="" to="" indicate="" a="" statistically="" significant="" difference.="" all="" experiments="" were="" performed="" at="" least="" in="">


Eredmények
A CPhG-k hatása a sejtek életképességére. A HepG2 sejteket különböző koncentrációjú CPhG-kkel (5, 25, 50, 100, 200 és 500 ug/ml) kezeltük 48 órán át (24 órával az oltás után). Amint az 1. ábrán látható, a 200 és 500 ug/ml CPhG-vel kezelt sejtek életképessége szignifikánsan csökkent a kontrollcsoporthoz képest (P<0.05). these="" findings="" indicated="" that="" cphgs="" could="" modulate="" cell="" viability="" in="" a="" dose‑dependent="">
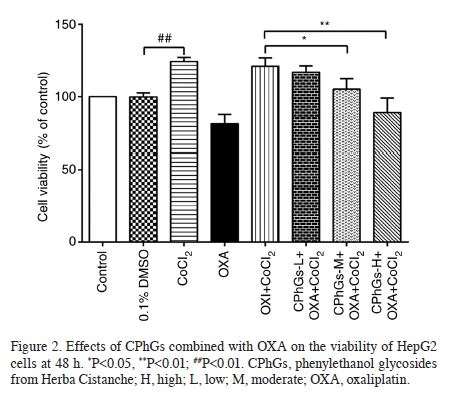
A CPhG-k fokozzák az OXA májrákra gyakorolt hatását. A CPhG-k OXA-modulált HepG2-sejtek életképességére gyakorolt hatását ezt követően értékeltük (2. ábra). ~48 óra elteltével a CPhG-k és az OXA kombinációja jelentősen csökkentette a HepG2 sejtek életképességét az OXA plusz CoCl2 csoporthoz képest. Pontosabban, a CPhGs-M plusz OXA plusz CoCl2 és a CPhGs-H plusz OXA plusz CoCl2 szignifikánsan gátolta a HepG2 sejtek életképességét az OXA plusz CoCl2 csoporthoz képest (P<0.05 and=""><0.01,>
A CPhG-k gátolják a májráksejtek migrációját és invázióját. A májráksejtek invazív potenciáljának és migrációs képességének további tanulmányozására a CPhG-kkel és OXA-val végzett kezelést követően sebgyógyító és Transwell vizsgálatokat végeztek. A sebgyógyulási vizsgálat azt mutatta, hogy a DMSO-csoporthoz képest a HepG2 sejtek migrációja csökkent CoCl2-vel, OXA-val és CPhG-kkel (200 vagy 500 ug/ml) végzett kezelést követően (P<0.05; fig.="" 3a="" and="" b).="" for="" the="" transwell="" assay,="" the="" invasive="" ability="" of="" cells="" was="" markedly="" inhibited="" in="" the="" co‑treatment="" groups="" (cphgs="" +="" oxa="" +="" cocl2)="" compared="" with="" that="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 3c="" and="" d).="" conversely,="" in="" the="" co‑treatment="" groups="" (cphgs="" +="" oxa="" +="" cocl2),="" the="" invasive="" potential="" and="" migratory="" ability="" of="" cells="" were="" markedly="">
A CPhG-k és az OXA hatása az apoptózisra. A CPhG-k és OXA kombinációjával végzett 48 órás kezelést követően a HepG2 sejteket Annexin V-FITC-vel és PI-vel festettük, majd áramlási citometriát végeztünk a celluláris apoptózis meghatározására. Amint a 4A. ábra mutatja, az együtt kezelt csoportok (CPhGs-L/M/H plusz OXA plusz CoCl2) fokozatos növekedést mutattak az apoptotikus sejtek arányában a CPhGs koncentráció növekedésével. A CPhG-kkel és OXA-val kezelt sejtek többsége a Q4 régióban lokalizálódott, ami azt jelzi, hogy a CPhG-k és OXA kombinációja korai stádiumban apoptózist indukált. Az OXA plusz CoCl2 csoporttal összehasonlítva a sejtek apoptotikus arányának szignifikáns emelkedése volt kimutatható az OXA-val, CoCl2-vel és közepes vagy nagy dózisú CPhG-vel kezelt csoportokban (P<0.01; fig.="" 4b).="" these="" findings="" indicated="" that="" the="" combination="" of="" oxa="" and="" cphgs="" may="" contribute="" to="" the="" apoptosis="" of="" hepg2="">
A HIF-1, LOXL2, E-cadherin és Twist mRNS expressziós szintjei CPhG-k és OXA együttes inkubációt követően. There were no statistical differences in the mRNA expression levels of HIF‑1α, LOXL2, E‑cadherin, and Twist between the control and DMSO groups (P>0.05; 5A-D ábra). Ezzel szemben a CoCl2 szignifikáns növekedést indukált a LOXL2, HIF-1 és Twist mRNS expressziós szintjében a DMSO-csoporthoz képest (P<0.01; fig.="" 5a,="" b="" and="" d).="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group,="" the="" mrna="" expression="" levels="" of="" loxl2,="" hif‑1α="" and="" twist="" were="" significantly="" enhanced="" in="" the="" cphgs‑h="" +="" oxa="" +="" cocl2="" groups=""><0.01; fig.="" 5a,="" b="" and="" d).="" by="" contrast,="" cocl2="" induced="" a="" significant="" downregulation="" in="" the="" mrna="" expression="" levels="" of="" e‑cadherin="" compared="" with="" those="" in="" the="" dmso="" group=""><0.01; fig.="" 5c).="" all="" concentrations="" of="" cphgs="" combined="" with="" oxa="" and="" cocl2="" were="" able="" to="" upregulate="" the="" mrna="" expression="" levels="" of="" e‑cadherin="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 5c).="" these="" results="" indicated="" that="" the="" combination="" of="" cphgs="" and="" oxa="" effectively="" inhibited="" the="" emt="" under="" hypoxic="">
A HIF-1, LOXL2, E-cadherin és Twist fehérje expressziós szintjei CPhG-k és OXA együttes inkubációt követően. A Western blot eredményei azt mutatták, hogy a HIF-1, LOXL2 és Twist fehérje expressziós szintjei hipoxiás körülmények között megemelkedtek a DMSO-csoporthoz képest. Ezzel szemben az E-cadherin fehérje expressziós szintje csökkent hipoxiás körülmények között (P<0.01; fig.="" 6a="" and="" b).="" notably,="" the="" protein="" expression="" levels="" of="" hif‑1α,="" loxl2,="" and="" twist="" were="" significantly="" decreased="" in="" the="" cphgs‑m="" +="" oxa="" +="" cocl2="" or="" cphgs‑h="" +="" oxa="" +="" cocl2="" groups="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 6a="" and="" b).="" compared="" with="" the="" dmso="" group,="" the="" cocl2="" treatment="" significantly="" decreased="" the="" expression="" level="" of="" e‑cadherin.="" in="" the="" cphgs="" groups,="" the="" protein="" expression="" levels="" of="" e‑cadherin="" were="" significantly="" increased="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 6b).="" these="" findings="" indicated="" that="" cphgs="" treatment="" could="" effectively="" inhibit="" the="" downregulation="" of="" e‑cadherin,="" and="" the="" upregulation="" of="" hif‑1α,="" loxl2,="" and="" twist="" induced="" by="">


Vita
A hipoxia gyakori jelenség a rák mikrokörnyezetében; ez elsősorban azzal a ténnyel függ össze, hogy a rákos sejtek szaporodása gyorsabb, mint az aberráns neoerek érképződése. Ezenkívül a hipoxia más biológiai folyamatokra is hatással van, beleértve a proliferációt, a metasztázisokat és a gyógyszerérzékenységet (21). A tumor hipoxiás mikrokörnyezete kulcsfontosságú a rák patogenezisében és progressziójában, valamint fontos a májrák gyógyszerrezisztenciájában és vaszkularizációjában (22).
Jelen tanulmányban a HepG2 sejteket különböző koncentrációjú CPhG-kkel kezelték, amelyek közül a CPhG-k (200 ug/ml) jelentősen csökkenthetik a sejtek életképességét. Nevezetesen, a CPhG-k dózisfüggő módon módosíthatják a sejtek életképességét. Hipoxiás körülmények között az OXA és a CPhG-k kombinációja (50 vagy 100 ug/ml) szignifikánsan gátolta a HepG2 sejtek életképességét, összehasonlítva az önmagában végzett OXA kezeléssel. Hasonló dózisfüggő tendenciát figyeltek meg a májráksejtek migrációs és inváziós vizsgálataiban. Jelenleg kiterjedt tanulmányokat végeztek a rákos sejt apoptózisának a májbetegség patogenezisében betöltött szerepének vizsgálatára (23-26). Számos stratégiát dolgoztak ki a májrák kezelésére az apoptózis elősegítésével (27-29); ezért a HepG2 sejt apoptózisába való beavatkozás ígéretes jelölt lehet a májrák megelőzésében és kezelésében. A HepG2 sejtek apoptózisa szignifikánsan javult a CPhGs-M/-H és OXA kombinációjával végzett kezelés után, összehasonlítva az OXA-val önmagában kezelt sejtekkel. Ezért azt jelezték, hogy a CPhG-k jelentősen fokozhatják az OXA daganatellenes hatását.
A HIF-1 képes feljavítani az E-cadherin, az N-cadherin és a Vimentin expressziós szintjét, valamint néhány transzkripciós faktort, mint például a Snail1/2, Zeb1 és Twist1. Ezt követően ez a celluláris polaritás elvesztéséhez, a sejt-sejt kapcsolatok meglazulásához, a citoszkeletális fehérje megváltozásához, valamint a rákos sejtek migrációjához és inváziójához vezethet, ami a rákos sejtek áttelepüléséhez vezethet a keringési rendszerbe a bazilaris membránon keresztül. és az azt követő metasztázis (30). A jelen tanulmányban a CoCl2-t a hipoxia modelljének indukálására használták, amely a HepG2 sejtek életképességének növekedését, valamint sejtmigrációt és inváziót váltott ki. Ezenkívül a HIF-1 mRNS és fehérje expressziós szintje jelentősen megnőtt, ami azt jelzi, hogy a CoCl2 indukálta egy
Twist és E-cadherin expresszió; ezért a jövőbeni tanulmányok több EMT-vel kapcsolatos markerre kívánnak összpontosítani, hogy értékeljék a CPhG-k gátló hatását a hypoxia által kiváltott EMT-re májrákban.
Beszámoltak arról, hogy a HIF-1 elősegíti a LOXL2 expresszióját, és fokozza a májráksejtek migrációját és invázióját, ami szorosan összefügghet a májrák rossz prognózisával (30). Egy korábbi tanulmányban a LOXL2 expressziós szintje a szomszédos májrákos szövetekben jelentősen megemelkedett a rákos szövetekben tapasztaltakhoz képest (35). Ezenkívül szorosan összefüggött a májrák inváziójával és metasztázisával. A LOXL2 gén csillapítása kis interferáló RNS-sel gátolta a HepG2 és SMCC-7721 sejtek proliferációját, ami a rákos sejtek sejtciklusának leállását és az apoptózis növekedését eredményezte (36). Shao és munkatársai (35) a májrákmintákban vett LOXL2 és a klinikopatológiai tényezők, a VM és a prognózis közötti összefüggést vizsgálták 201 műtéten átesett eset között. Feltételezték, hogy a LOXL2 fontos szerepet játszik a májrák patogenezisében és progressziójában, ami a gyógyszerfejlesztés célpontja lehet. Továbbá Peng és munkatársai (37) kimutatták, hogy a LOXL2 képes aktiválni a Snail/E-cadherin és az Src kinase/Focal adhéziós kináz jelátviteli útvonalakat, ami hozzájárulhat a gyomorráksejtek EMT-jének patogeneziséhez és progressziójához. Jelen tanulmányban hipoxiás körülmények között a LOXL2 mRNS és fehérje expressziós szintje megnőtt, míg expressziója lecsökkent az OXA kezelést követően. Ezenkívül a CPhG-k és OXA kombinációjával végzett kezelés a LOXL2 expresszió nyilvánvaló csökkenését eredményezte, ami hatékonyan segítheti az OXA daganatellenes hatását a májrákra.
A jelen tanulmánynak van néhány korlátja. A jelen vizsgálatnak további két májrák sejtvonalat kellett volna használnia, köztük az SMCC-7721 sejtvonalat, de ezeket nem lehetett felhasználni, mivel ezeket a sejtvonalakat nem lehetett megvásárolni, mert rosszul azonosították őket, és HeLa sejtekből származtak. Ezenkívül a jelen tanulmány nem elemezte a CPhG-k különböző koncentrációinak antioxidáns hatásait a sejtekben.
Összefoglalva, a CPhG-k megváltoztathatják a májráksejtek hipoxiás tumoros mikrokörnyezetét a HIF-1 jelátviteli útvonal modulálásával. Ezenkívül a májráksejtek OXA-val szembeni érzékenysége jelentősen megnőtt a CPhG-k és OXA kombinációjával végzett kezelés hatására. Ezek az eredmények új kezelési stratégiát jelenthetnek a májrák kemoterápiával szembeni érzékenységének javítására.


LIMEI WEN1,2*, JUNPING HU1*, JIAWEI ZHANG1 és JIANHUA YANG1,2
1 College of Pharmacy, Xinjiang Medical University, Urumqi, Xinjiang 830054; 2Department of Pharmacy, The First Affiliated Hospital, Xinjiang Medical University, Urumqi, Xinjiang 830011, PR China
2020. július 29-én érkezett; Elfogadva: 2021. március 9
DOI: 10.3892/mmr.2021.12156
Köszönetnyilvánítás
Nem alkalmazható.
Finanszírozás
A jelen tanulmányt a Xinjiang Key Laboratory of Natural Drug Active Components and Drug Release Technology (XJDX1713 sz. támogatás), a Hszincsiangi Ujgur Autonóm Régió Tudományos és Technológiai Innováció Vezetőjének Tartalékjelölt Projekt (2019XS14 sz. támogatás) támogatta. a Kínai Nemzeti Természettudományi Alapítvány (81860735. sz. támogatás) és a Bethune Jótékonysági Alapítvány „Bethune·Quest – gyógyszerészeti tudományos kutatási kapacitás kiépítése” (B-19-H-20200622 sz. támogatás).
Az adatok és anyagok elérhetősége
A jelenlegi vizsgálat során felhasznált és/vagy elemzett adatkészletek ésszerű kérésre elérhetők a megfelelő szerzőtől.
A szerzők hozzászólásai
Az LMW és a JWZ elvégezte a kísérleteket, elkészítette a kéziratot, és megerősítette az összes nyers adat hitelességét. JPH és JHY tervezte a jelen tanulmányt. Minden szerző elolvasta és jóváhagyta a végső kéziratot.
Etikai jóváhagyás és hozzájárulás a részvételhez
Nem alkalmazható.
A beteg hozzájárulása a közzétételhez
Nem alkalmazható.
Versengő érdekek
A szerzők kijelentik, hogy nincsenek egymással versengő érdekeik.
Hivatkozások
1. Hepatocelluláris karcinóma. Nat Rev Dis Primers 2: 16019, 2016.
2. Gingold JA, Zhu D, Lee DF, Kasab A és Chen J: Genomic profiling and metabolic homeostasis primer májrákokban. Trends Mol Med 24: 395-411, 2018.
3. McGuire S: World cancer report, 2014. Genf, Svájc: Egészségügyi Világszervezet, Nemzetközi Rákkutató Ügynökség, WHO sajtó, 2015. Adv Nutr 7: 418-419, 2016.
4. Gholamreza K, Jadidi-Niaragh F, Jahromi AS, Zandi K és Hojjat-Farsangi M: A daganatsejtek rezisztenciájának mechanizmusai a jelenlegi célzott terápiás szerekkel szemben. Tumor Biol 37: 10021-10039, 2016.
5. Dong X és Mumper RJ: Nanomedicinális stratégiák a multirezisztens daganatok kezelésére: Jelenlegi fejlődés. Nanomedicine (Lond) 5: 597-615, 2010.
6. Xie Y és Zhong DW: Az AEG-1 a hipoxia által kiváltott hepatocelluláris karcinóma kemorezisztenciájához kapcsolódik a PI3K/AKT/HIF-1alpha/MDR-1 útvonal szabályozásán keresztül. EXCLI J 15: 745-757, 2016.
7. Xiong H, Ni Z, He J, Jiang S, Li X, He J, Gong W, Zheng L, Chen S, Li B és munkatársai: Az LncRNA HULC autofágiát vált ki a Sirt1 stabilizálásán keresztül, és gyengíti a HCC sejtek kemoszenzitivitását. Oncogene 36: 3528-3540, 2017.
8. Gade TPF, Tucker E, Nakazawa MS, Hunt SJ, Wong W, Krock B, Weber CN, Nadolski GJ, Clark TWI, Soulen MC és munkatársai: Az ischaemia nyugalmat és autofágia-függőséget indukál hepatocelluláris karcinómában. Radiology 283: 702–710, 2017.
9. Siegel RL, Miller KD és Jemal A: Rákstatisztika, 2017. CA Cancer J Clin 67: 2017. 7–30.
10. Dong LQ, Shen BQ és Ma Y: A hypoxia mikrokörnyezetének kutatása hepatocelluláris karcinómában. Zhong Guo Pu Wai Ji Chu Yu Lin Chuang Za Zhi 25: 1254-1258, 2018 (kínai nyelven).
11. Moon HJ, Finney J, Ronnebaum T és Mure M: Humán lizil-oxidáz-szerű 2. Bioorg Chem 57: 231–241, 2014.
12. Ferreira S, Saraiva N, Rijo P és Fernandes AS: LOXL2 inhibitorok és a mellrák progressziója. Antioxidánsok (Bázel) 10:312, 2021.
13. Philp CJ, Siebeke I, Clements D, Miller S, Habgood A, John AE, Navaratnam V, Hubbard RB, Jenkins G és Johnson SR: Az extracelluláris mátrix keresztkötések fokozzák a fibroblasztok növekedését és védenek a mátrix proteolízisétől tüdőfibrózisban. Am J Respir Cell Mol Biol 58: 594-603, 2018.
14. Galván JA, Zlobec I, Wartenberg M, Lugli A, Gloor B, Perren A és Karamitopoulou E: Az E-cadherin represszorok SNAIL, ZEB1 és ZEB2 expressziója tumor- és stromasejtek által befolyásolja a tumor-bimbózó fenotípust, és a stroma heterogenitására utal sejtek hasnyálmirigyrákban. Br J Cancer 112: 1944–1950, 2015.
15. Gu C, Yang X és Huang L: Cistanches herba: A neuropharmacology review. Front Pharmacol 7: 289, 2016.
16. Fu Z, Fan X, Wang X és Gao X: Cistanches Herba: Kémiai, farmakológiai és farmakokinetikai tulajdonságainak áttekintése. J Ethnopharmacol 219: 233-247, 2018.
17. Hu Q, You SP, Liu T, Wang B, Liu X és Jiang Y: Vizsgálat a cistanche májrák elleni hatásáról. Carcinog Teratog Mutagen 30: 194–199, 2018.
18. Mao J, Tian Y, Wang C, Jiang K, Li R, Yao Y, Zhang R, Sun D, Liang R, Gao Z és mtsai: A CBX2 a YAP foszforilációján keresztül szabályozza a proliferációt és az apoptózist hepatocelluláris karcinómában. J Cancer 10: 2706-2719, 2019.
19. Qin Y, Liu HJ, Li M, Zhai DH, Tang YH, Yang L, Qiao KL, Yang JH, Zhong WL, Zhang Q és munkatársai: A szalidrozid javítja a hipoxiás tumor mikrokörnyezetét és megfordítja a platina gyógyszerek gyógyszerrezisztenciáját HIF-1 jelátviteli útvonal. EBioMedicine 38: 2018. 25–36.
20. Livak KJ és Schmittgen TD: Relatív génexpressziós adatok elemzése valós idejű kvantitatív PCR-rel és a 2(-Delta Delta C(T)) módszerrel. Methods 25: 402–408, 2001.
21. Vaupel P: A tumor mikrokörnyezetélettana és hatásai a sugáronkológiára. Semin Radiat Oncol 14: 198-206, 2004.
22. Chen C és Lou T: Hypoxia-indukálható faktorok hepatocellularis carcinomában. Oncotarget 8: 46691-46703, 2017.
23. Schwabe RF és Luedde T: Apoptosis és nekroptózis a májban: élet-halál kérdése. Nat Rev Gastroenterol Hepatol 15: 738-752, 2018.
24. Kanda T, Matsuoka S, Yamazaki M, Shibata T, Nirei K, Takahashi H, Kaneko T, Fujisawa M, Higuchi T, Nakamura H és munkatársai: Apoptosis és nem alkoholos zsírmáj betegségek. World J Gastroenterol 24: 2661-2672, 2018.
25. Pittala S, Krelin Y és Shoshan-Barmatz V: Májrák és kapcsolódó patológiák megcélzása egerekben mitokondriális VDAC1-alapú peptiddel. Neoplasia 20: 594-609, 2018.
26. Jing ZT, Liu W, Xue CR, Wu SX, Chen WN, Lin XJ és Lin X: Az SC79 AKT aktivátor megvédi a májsejteket a TNF által közvetített apoptózistól, és enyhíti a d-Gal/LPS által kiváltott májkárosodást. Am J Physiol Gastrointest Liver Physiol 316: G387-G396, 2019.
27. Zhu YJ, Zheng B, Wang HY és Chen L: Új ismeretek a szorafenib rezisztencia mechanizmusairól májrákban. Acta Pharmacol Sin 38: 614–622, 2017.
28. Wei R, Cao J és Yao S: A Matrine elősegíti a májráksejtek apoptózisát azáltal, hogy gátolja a mitofagiát és a PINK1/Parkin útvonalakat. Cell Stress Chaperones 23: 1295-1309, 2018.
29. Shen L, Zhang G, Lou Z, Xu G és Zhang G: A kriptotansinon fokozza az arzén-trioxid hatását a májráksejtek kezelésében azáltal, hogy apoptózist indukál a foszforilált-STAT3 in vitro és in vivo leszabályozása révén. BMC Complement Altern Med 17: 106, 2017.
30. Wu F, Zhang J, Liu Y, Zheng Y és Hu N: A HIF1 genetikai változatai és fehérje expressziói meghatározzák a platina alapú kemoterápiára adott választ és a klinikai kimenetelt előrehaladott NSCLC-ben szenvedő betegeknél. Cell Physiol Biochem 32: 1566-1576, 2013.
31. Heerboth S, Housman G, Leary M, Longacre M, Byler S, Lapinska K, Willbanks A és Sarkar S: EMT és tumor metastasis. Clin Transl Med 4: 6, 2015.
32. Hapke RY és Haake SM: Hipoxia által kiváltott epiteliális átmenet a mesenchymalisba rák esetén. Cancer Lett 487: 10–20, 2020.
33. Zhao Z, Rahman MA, Chen ZG és Shin DM: A Twist1 többszörös biológiai funkciója különböző rákos megbetegedések esetén. Oncotarget 8: 20380-20393, 2017.
34. Goossens S, Vandamme N, Van Vlierberghe P és Berx G: Az EMT transzkripciós faktorok újraértékelése a rák kialakulásában: Beyond EMT and MET. Biochim Biophys Acta Rev Cancer 1868: 584-591, 2017.
35. Shao B, Zhao X, Liu T, Zhang Y, Sun R, Dong X, Liu F, Zhao N, Zhang D, Wu L és munkatársai: A LOXL2 elősegíti a vasculogenic mimicry és a tumor agressiveness in hepatocellularis carcinoma. J Cell Mol Med 23: 1363-1374, 2019.
36. Wu L, Zhang Y, Zhu Y, Cong Q, Xiang Y és Fu L: A LOXL2 hatása hepatocelluláris karcinómában. Mol Med Rep 14: 1923–1932, 2016.
37. Peng L, Ran YL, Hu H, Yu L, Liu Q, Zhou Z, Sun YM, Sun LC, Pan J, Sun LX és munkatársai: A Secreted LOXL2 egy új terápiás célpont, amely elősegíti a gyomorrák metasztázisát az Src-n keresztül /FAK útvonal. Carcinogenesis 30: 1660-1669, 2009.