

1. rész: A kvercetin 3-O- -D-glükuronid gyulladáscsökkentő, antioxidáns, hidratáló és melanogenezis elleni hatásai emberi keratinocitákban és melanomasejtekben az NF-κB és AP-1 útvonalak aktiválásával
Mar 21, 2022
További információért forduljontina.xiang@wecistanche.com
Absztrakt: kvercetinA jelentések szerint a 3-O- -D-glükuronid (Q-3-G), a kvercetin glükuronid konjugátumagyulladáscsökkentőtulajdonságai a lipopoliszacharidok által stimulált makrofágokban, valamint rákellenes és antioxidáns tulajdonságok. A kvercetintől eltérően, amelyről széles körben leírták, hogy számos farmakológiai aktivitással rendelkezik, beleértve a bőrvédő hatásokat, a Q-3-G bőrben előforduló farmakológiai előnyei és mechanizmusai tisztázásra várnak. Ez a tanulmány a Q-3-UVB-indukálta vagy H2O2-indukált oxidatív stressz elleni bőrvédő tulajdonságainak jellemzésére összpontosított, beleértve a gyulladáscsökkentő és antioxidáns tulajdonságokat, valamint a hidratáló hatásokat ésantimelanogenezishumán keratinociták (HaCaT) és melanoma (B16F10) sejtek felhasználásával végzett tevékenységek. A Q-3-G csökkentette a gyulladást elősegítő gén és a citokin, például a ciklooxigenáz-2 (COX-2) és a tumornekrózis faktor (TNF) expresszióját a HO-ban vagy az UVB- besugárzott HaCaT sejtek. Azt is kimutattuk, hogy az O-3-Gexhibitek antioxidáns hatást fejtenek ki szabadgyök-fogó vizsgálatok, áramlási citometria és a nukleáris faktor eritroid 2--hoz kapcsolódó 2. faktor (Nrf2) fokozott expressziója révén. A Q-3-G csökkentette a melanintermelést a melanocita-stimuláló hormon (-MSH) által kiváltott B16F10 sejtekben. A Q-3-G hidratációs hatásait és mechanizmusait a hidratáló faktorral kapcsolatos gének, például a transzglutamináz-1(TGM-1), a filaggrin (FLG) és a hialuronsav-szintáz értékelésével vizsgáltuk. (HAS)-1. Ezenkívül a Q-3-G fokozta a c-Jun, a Jun N-terminális kináz (JNK), a mitogen-aktivált protein kináz (MAPK) kináz 4 (MKK4) és a TAK1 foszforilációját, amelyek részt vesznek a MAPK-kban/AP-ban. -1 reakcióút, valamint az NF-kB útvonalban részt vevő IkB, IkB kináz (IKK)-, Akt és Src foszforilációja. Összességében kimutattuk, hogy a Q-3-G gyulladáscsökkentő, antioxidáns, hidratáló és antimelanogenezis tulajdonságokat fejt ki az emberi keratinocitákban és melanomasejtekben az NF-kB és AP-1 útvonalakon keresztül.
Kulcsszavak: kvercetin 3-O- -D-glükuronid; UV-védelem; hidratáló; antimelanogenezis; AP-1; NF-kB
1. Bemutatkozás
A bőr, a test legnagyobb szerve, olyan gátat képez, amely nagy szerepet játszik a test védelmében a külső környezettől és a káros tényezőktől, például az ultraibolya sugárzástól, a fertőző mikrobáktól és a káros vegyi anyagoktól. Ez a gát szabályozza a test elektrolit-egyensúlyát és hőmérsékletét is, és megakadályozza a nedvességvesztést [1,2]. Az emberi bőr három rétegből áll: az epidermiszből, a dermiszből a függelékekkel és a bőr alatti szövetből [3]. Az epidermális réteg fontos szerepet játszik a testhőmérséklet fenntartásában.
A keratinociták, amelyek a bőr epidermiszében bőségesen előforduló komponensek, szoros kölcsönhatásba lépnek a másikkal a dezmoszómák és a szoros csomópontok révén, amelyek hatékony fizikai-kémiai gátat tesznek lehetővé[4]. Bár a bőr védőgátként működik, az ultraibolya (UV) sugárzás jelentős hatással van a legtöbb sejtre, beleértve a keratinocitákat, a bőr külső rétegét. Az UV-sugárzás bőröregedést, bőrkárosodást, ráncokat és hiperpigmentációt okozhat, amit az egyik legkritikusabb kockázati tényezőnek tartanak [5]. Az UV-fény három hullámhossz-tartományból áll: UVA(320-400 nm), UVB (280-320 nm) és UVC (200-280 nm). A hidrogén-peroxidon (H2O2) kívül, amelyről ismert, hogy hozzájárul az oxidatív stresszhez, az UVB a ROS-t termelő enzimek aktiválása révén reaktív oxigénfajták (ROS) termelődéséhez vezethet [6]. Leírták, hogy a ROS kontrollálatlan felhalmozódása a sejtekben, beleértve a keratinocitákat, oxidatív módosulásokat okoz a lipidekben, fehérjékben, nukleinsavakban és más intracelluláris molekulákban, amelyek ezt követően különböző típusú bőrkárosodásokhoz és öregedéssel kapcsolatos folyamatokhoz, például sejthalálhoz, oxidatív stresszhez, és gyulladás [7,8]. Ezenkívül az oxidatív stresszreakcióról ismert, hogy befolyásolja a különböző sejtkomponensek károsodását [9]. A sérült bőrsejtek gyulladásos reakciókhoz is vezethetnek, ami krónikusan károsodott bőrt eredményez [10]. Az UVB vagy H2O2-biológiai folyamatokon keresztül közvetített bőrkárosodás egyik típusa a gyulladásos gének, például a ciklooxigenáz-2 (COX-2) és a gyulladást elősegítő citokinek expressziója [11]. Ezért a biztonságosabb, robusztusabb és hatékonyabb bőrvédő hatások kialakítása elengedhetetlen az UVB vagy H2O2 által közvetített bőrkárosodások megelőzéséhez és blokkolásához.
A bőr hidratálása is fontos szerepet játszik normál működésének megőrzésében. Különösen a stratum corneum (SC) rendelkezik védő hatással a vízveszteség ellen [12]. A stratum corneum víztartalma részt vesz a bőr hámlásában és megfelelő érésében, míg az SC-ben a vízhiány elősegíti a corneocyták felhalmozódását és diszfunkcióját [12,13]. A keratinociták differenciálódásának végső szakaszában plazmamembránja és sejtszervecskéi eltűnnek, majd a kalcium beáramlása transzglutaminázt (TGM) indukál más fehérjékkel való keresztkötésre. A TGM-1 hiánya vagy elvesztése a sejtburok hibás térhálósodásához vezet. A lamella ichthyosis a TGM elvesztése által okozott betegség egyik példája-1. Ezenkívül a filaggrin (FLG), a képződött keratin mátrix szerepet játszik az SC képződésében, mivel vázként működik a cornified burok fehérjék és lipidek megkötésében[14] a g-glutamil-lizin keresztkötési reakcióinak, ATGM-einek és membránjának katalizálása révén. -asszociált enzimek, amelyek integritást biztosítanak az SC-knek [15]. Ezen túlmenően a hialuronsav (HA) a természetes nedvesség faktor (NMF) egy fajtája, amely részt vesz a bőr nedvességmegtartásában, és határozott profilt mutat a bőr belső öregedésében, gyógyszerszállító szer, és az extracelluláris mátrix fontos összetevője. [16,17]. A HA szerepet játszik a bőr nedvességtartalmának növelésében a hialuronsav szintáz (HAS) gének szabályozásával; emellett a retinsav (A-vitamin) hatékonyan szabályozhatja a HA-t az epidermiszben [17]. A TGM-1, az FLG és a HAS-12,3 az NMF-termeléshez kapcsolódó gének [18]. Ezen túlmenően a transzkripciós faktorok, például az aktivátor fehérje-1(AP-1) és a nukleáris faktor (NF)-kB aktiválása részt vesz a gyulladást elősegítő anyagok előállításában, amelyek optimalizálják a bőr védőrétegét és a bőr hidratálását. az AP-1 és az NF-kB útvonalakon[19] keresztül. Az AP-1 útvonal upstream jelátviteli enzimei közé tartoznak a mitogén által aktivált protein kinázok (MAPK-k), például a c-Jun N-terminális kináz (JNK), az extracelluláris szignál-szabályozott kináz (ERK) és a p38, míg az Src, Az Akt, az IkB -kináz (IKKo/ ) és a KBO (IkBa) az NF-KB útvonalhoz tartoznak [20. A bőr melanint is termel az epidermális rétegben, különösen a melanocitákban – a melanin fő forrásában –, amelyek hozzájárulnak a bőr színének és a melanogenezisnek a meghatározásához [21]. Az UVB besugárzás és a melanocita-stimuláló hormon (o-MSH) serkentheti a melanin szekréciót, ezáltal beindíthatja a melanogenezist [22. A melanogenezis során az -MSH aktiválja a protein kináz A-t (PKA), a protein microphthalmia-asszociált transzkripciós faktort (MITF) és a cAMP válaszelem-kötődést (CREB) [23]. A melanin egyik funkciójának tekintik az UV-sugárzás által okozott bőrkárosodás megelőzését, beleértve a napfényt is. Azonban az öregedés, a melanocita-stimuláló hormon és az UV-sugárzás okozta túlzott melanintermelés vagy a melanintartalom hiánya elősegíti a szeplőket, melazmát, időskori lentigint és egyéb hiper/hipopigmentációs rendellenességeket, amelyek negatív hatással lehetnek a megjelenésre és a bőrre. egészségügy [24]. Így a melanogenezis szabályozása is kívánatos az emberi test egészségének és kozmetikai megjelenésének megőrzése érdekében.
kvercetinegy túlnyomórészt kiosztott flavonol típusú flavonoid, amely zöldségekben, gyümölcsökben, italokban és gyógynövényekben található [25]. Következésképpen a kvercetint alaposan tanulmányozták annak érdekében, hogy farmakológiai előnyökkel bírjon, beleértve gyulladáscsökkentő, érelmeszesedés-ellenes,antioxidáns, rákellenes és bőrvédő tulajdonságokkal, és összefügg a melanogenezissel [24,26-29]. Azonban számos érzékeny és megbízható módszerekkel végzett munka kimutatta, hogy a kvercetint nem mutatták ki a plazmában [30-33], és alig található az agyban [34,35]. A kvercetin, amely általában glikozid formában jelenik meg, jól felszívódik, és többnyire hidrolizálódik, és a vékonybélben, a vastagbélben, a májban és a vesében metabolizálódik konjugált metabolitokká [30,36-38]. A keringő vérben a kvercetin-aglikon vagy glikozidjai helyett csak a konjugált metabolitokat, például a glükuronidot vagy a szulfátot (metilált vagy nem metilált) mutatják ki. A 3/-metil-kvercetin-3-glükuronidot, a kvercetin-3-glükuronidot és a kvercetin-3'-szulfátot a sült hagyma elfogyasztásától számított 1,5 órával a fő plazma metabolitokként azonosították[30, 32]. Ezek a kvercetin metabolitok a vékonybélben és a májban képződnek biotranszformációs enzimek, köztük UDP-glükuronil-transzferázok hatására a II. fázisú metabolizmus eredményeként [29,39,40]. Arról is beszámoltak, hogy a kvercetin konjugált metabolitjai az emberi plazmában 10--10- M-fok közötti koncentráció-tartományban halmozódnak fel, miután 1 héten keresztül rendszeresen fogyasztanak hagymát étkezés közben[41]. A kvercetin metabolitjainak felezési ideje meglehetősen magas, körülbelül 11-28 óra [29]. Mivel ezeket a vegyületeket a konjugált kvercetin metabolitok fő formáiként figyelték meg, elengedhetetlenek lennének olyan vizsgálatok, amelyek a flavonolok biológiai aktivitására összpontosítanak ezen konjugált metabolitok felhasználásával, ami arra késztetett bennünket, hogy tanulmányozzuk az egyik konjugált kvercetin metabolit biológiai aktivitását. Az egyik leggyakrabban előforduló glükuronid metabolit, amely főként a plazmában és a szövetekben, köztük a májban, a vesében és az agyban található, a kvercetin 3-O- -D-glükuronid (Q-3-G) (1. ábra) [31,35,40,42,43], amelyek hasonló, erősebb vagy gyengébb aktivitásokat generálhatnak a különböző modellekben szereplő kiindulási vegyületekhez képest. A Q-3-G a plazmán keresztül a célszövetekbe kerül, hogy kifejtse biológiai aktivitását [39]. Az O-3-G hatékony metabolitnak bizonyult patkányplazmában a kvercetin orális adagolása után [43]. Más vizsgálatokban azt találták, hogy a Q-3-G-tartalmú metabolit felhalmozódott az aortában kvercetinben gazdag táplálék bevétele után, és az emberi vérben 0-tól kezdődően kimutatható hatóanyagként azonosították.{48} } μM【44】. Ezenkívül a Q-3-G megtalálható a borban [45] és olyan gyógynövényekben, mint a Hypericum hirsutum, a Nelumbo nucifera, az Oenothera biennis és a zöldbab [46-49].Q-3-G gyulladáscsökkentő komponensként írták le LPS-stimulált körülmények között, és antioxidáns tulajdonságokat mutatott a vérplazmában [50-52]. A kvercetin alkalmazásának hosszú történetéhez és széles körű tanulmányozásához képest azonban a Q{57}}G tanulmányozása még felfedezésre vár. Ezért Q-3-G-t választották a kvercetin metabolitjainak képviselőjének, mint a kvercetin aktív in vivo játékosának. Ezenkívül még nem teljesen tisztázott a Q-3-G bőrvédő hatásokban betöltött szerepe. Ebben a tanulmányban különböző in vitro értékelésekkel vizsgáltuk a Q-3-G bőrvédő hatását az UVBor H2O2-indukálta oxidatív stresszel és gyulladással szemben, valamint a bőr hidratálását HaCaT-ben (egy humán keratinocita sejtvonal). sejtek, valamint az antimelanogenezis aktivitás a B16F10 (egy egér melanoma sejtvonal) sejtekben.


2. Eredmény
2.1. A Q-3-G gyulladáscsökkentő és antioxidáns hatásai UVB vagy H2O2-stimulált HaCaT-sejtek ellen
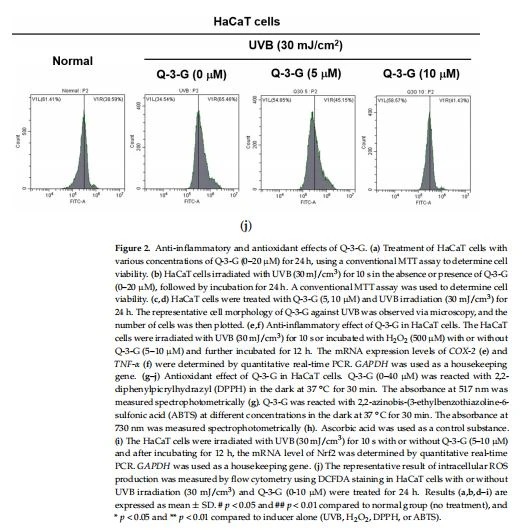
Az UV-sugárzás károsíthatja a bőrszövetet. Az UV-sugárzás számos káros tényezőt aktivál, beleértve az oxidatív stresszt, az apoptotikus sejthalált, a gyulladást és a bőr öregedését. Annak érdekében, hogy meghatározzuk a Q-3-G UV-védő aktivitását, kezdetben azt értékeltük, hogy a Q-3-G hatással van-e a humán keratinociták sejtéletképességére. 3-(4-5-Dimetil-tiazol-2-il)-2,5-difenil-243-tetrazólium-bromid (MTT) esszé segítségével vizsgáltuk a citotoxikus hatásokat. O-3-G mennyisége a HaCa sejtekben. Amint a 2a. ábra mutatja, 2.5-20 uM koncentrációnál nem volt jelentős interferencia a sejtek életképességében a Q-3-G által, ami azt jelzi, hogy az O-3-G nem mutatott citotoxicitást egészen addig. 20 μM, és nem károsította a keratinocitákat, a bőrsejtek felszíni rétegét. Ezt követően értékeltük a Q-3-G bőrvédő hatásait UVB-sugárzásnak kitett HaCaT-sejtekben. 30 mJ/cm² UVB besugárzás után a Q-3-G koncentrációfüggő módon jelentősen megvédte a HaCaTsejteket az UVB által kiváltott sejthaláltól (2b. ábra). Az MTT assay-vel összhangban, mikroszkóphoz csatlakoztatott kamera segítségével a HaCaT sejtek morfológiájának rögzítésére a Q-3-G védelmet nyújtott az UVB-sugárzással besugárzott HaCaT sejtek okozta sejthalál ellen 10 μM koncentrációig (2c ábra). . A HaCaT sejtek száma az egyes feltételek mellett 482 volt a kezeletlen csoportban, 91 az UVB 30 mJ/cm-es csoportban, 276 az UVB 30 mJ/cm² plusz 5 μM O-3-G csoportban és 320 az UVB 30 csoportban. mJ/cm² plusz 10 μM Q-3-G csoport (2d. ábra). Ezek az eredmények megerősítették, hogy a Q-3-G gátolja az UVB által kiváltott HaCaT károsodást, és megmenti a bőrvédő hatást az UVB besugárzástól.

A gyulladás előfordulása és súlyosbodása a szervezetben időnként aktiválja a makrofágokat és felszabadít néhány citokint. A gyulladás az oxidatív stressz jellemzője. Vizsgáltuk a Q-3-G gyulladáscsökkentő hatását UVB vagy HO2-indukálta gyulladással szemben. Köztudott, hogy az UVB elősegítheti a DNS-károsodást és a bőrsejtek gyulladását 【10】. A HaCaT sejteket 30mJ/cm² UVB-vel sugároztuk be, a HaCaT sejteket H2O2-vel (500 uM) inkubáltuk. Valós idejű PCR vizsgálatot alkalmaztunk a COX-2 gyulladásos enzim és a gyulladást elősegítő citokin TNF- mRNS expressziójának ellenőrzésére. A 2e,f ábrán látható eredmények szerint az O-3-G 10 μM koncentrációja szignifikánsan gátolta a COX-2 és a TNF- mRNS expresszióját. Következésképpen a Q-3-G elnyomta a HaCaT sejtekben kiváltott gyulladásos válaszokat UVB-sugárzás vagy H2O2 besugárzás után.
2,2'-azinobisz-(3-etilbenzotiazolin-6-szulfonsav)(ABTS) és 2,2-difenil-lpikrilhidrazil(DPPH) gyökfogó vizsgálatokat alkalmaztunk – széles körben használt modellrendszereket. természetes vegyületek in vitro tisztító aktivitásának vizsgálata – a Q-3-G antioxidáns tulajdonságainak felmérése különböző koncentrációkban. A HaCaT sejteket Q-3-G-vel kezeltük koncentrációfüggő módon 25-40 μM-tól DPPH jelenlétében, és az eredmény 2,5 uM feletti koncentrációnál szignifikáns befogó aktivitást mutatott (2g. ábra). . Az ABTS-teszt szintén szignifikánsan kimutatta a Q-3-G szabad gyökfogásra gyakorolt hatását koncentrációfüggő módon, 1,75 μM IC50 értékkel (2h ábra). Pozitív kontrollként az aszkorbinsav (AA) mutatta a legnagyobb antioxidáns hatást mind a DPPH, mind az ABTS tesztekben. A nukleáris faktor eritroid 2-kapcsolódó 2-es faktoráról (Nrf2), amely az egyik antioxidáns válaszelem (ARE) függő gén, a jelentések szerint szabályozza a védő oxidoreduktázokat és nukleofil szubsztrátjait, ezáltal elősegíti az antioxidáns enzimek működését a károsodások eltávolítása és helyreállítása érdekében. rendszerek [53]. Ezt követően megvizsgáltuk a Nrf2 expressziós szintjét UVB-besugárzott HaCaT sejtekben. A fenti eredményeket megerősítve, az O-3-G szignifikánsan növelte a Nrf2 expressziós szintjét UVB besugárzás hatására a kontrollhoz képest koncentrációfüggő módon, akár 10 uM-ig (2i. ábra), ami arra utalt, hogy a Q-3- A G antioxidáns hatást fejt ki mind kémiailag, mind biológiailag, szabadgyökfogó tulajdonsággal, és növeli a Nrf2-függő ARE jelátvitel védőhatását. Ezenkívül ROS áramlási citometriát is végeztünk diklór-dihidrofluoreszcein-diacetát (DCFDA) alkalmazásával UV-körülmények között. Az antioxidánsról széles körben ismert, hogy elnyomja a celluláris stresszorokat azáltal, hogy gátolja a ROS termelést [54]. Az eredmény azt mutatta, hogy az 5 és 10 μM koncentrációjú Q-3-G-vel való kezelés csökkentette az UVB-indukált ROS szintjét (2j. ábra). Összességében ezek az adatok azt sugallják, hogy a Q-3-bőrvédő tulajdonságokkal rendelkezik, például gyulladáscsökkentő és antioxidáns hatást fejt ki a H2O vagy az UVB által kiváltott oxidatív stressz és gyulladás ellen a HaCaT sejtekben.


2.2. Antitimelanogenezis hatás a B16F10-ben és hidratáló hatás a Q-3-G HaCaT sejtjeiben
Az O-3-G melanogenezisre gyakorolt hatásának vizsgálata érdekében a melanomasejteket -MSH-val kezeltük 48 órán keresztül, hogy melanint választhassanak ki a B16F10 sejtekben. MTT-tesztek alkalmazásával először megerősítettük, hogy a Q-3-G nem volt citotoxicitása a B16F10 sejtekben 20 μM-ig terjedő koncentrációban 48 órán keresztül (3a. ábra). Ez az eredmény a következő értékeléseknél azt mutatta, hogy az O-3-G hatása a B16F10-ben nem a sejthalál következménye. Ezt követően a B16F10-et Q-3-Gand -MSH-val értékeltük 48 órán keresztül, hogy meghatározzuk a Q-3-G melanogenezisre gyakorolt hatását. A 3b. ábra szerint a Q-3-G jelentősen gátolta a melanin szekréciót. A pozitív kontroll arbutin szintén szignifikánsan csökkentette a melanin szekréciót.
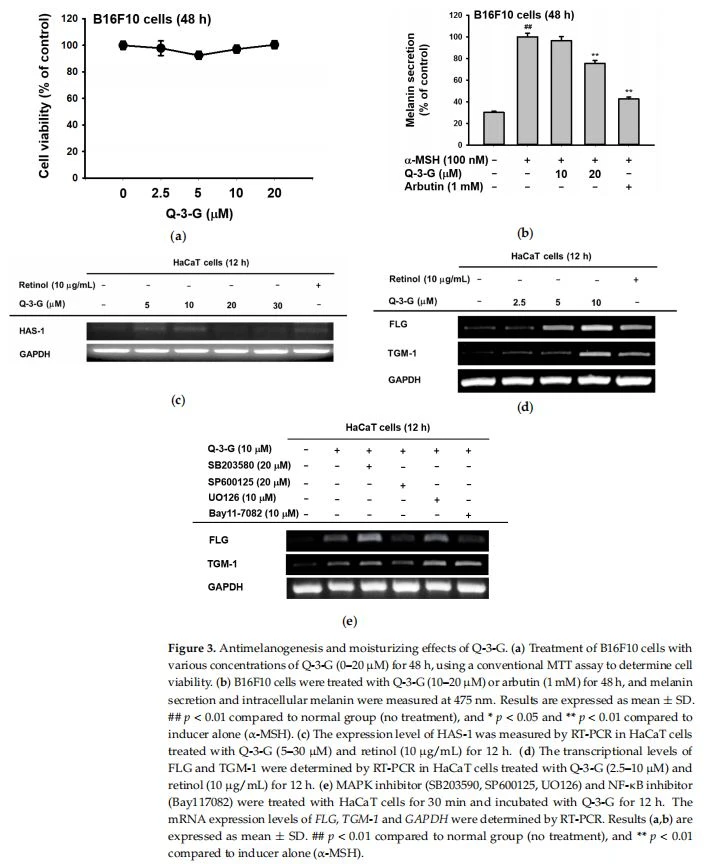
A bőr nedvességtartalmával kapcsolatos molekula a hialuronsav (HA). Amint korábban említettük, a HA, amely az epidermiszben és a dermiszben eloszlik, egy NMF, amely fokozza a bőr hidratáltságát [55]. Reverz transzkripciós PCR (RT-PCR) assay segítségével vizsgáltuk a HAS-1 transzkripciós szintjét 12 óra elteltével 30 uM-ig terjedő Q-3-G koncentrációval. A HAS elősegíti a közepes méretű HA felhalmozódását a keratinocitákban [12]. Ahogy a 3c. ábrán látható, a HAS-1 expressziója Q-3-G-vel 10 μM-ig növekedett. A hidratáló faktor mellett az FLG és a TGM{{ expresszióját is megvizsgáltuk. 13}}. Pozitív kontrollcsoportként retinolt használtunk. Az FLG és a TGM-1 transzkripciós szintje jelentősen megnőtt a Q-3-G-vel történő kezelés után 10 μM-ig (3d. ábra). Ezek az eredmények arra utalnak, hogy a Q-3-G bőrhidratáló hatással bír a HaCaT sejtekben. Ezenkívül SB203580 (p38 inhibitor), SP600125 (JNK inhibitor), UO126 (ERK inhibitor) és Bay11-7082 (NF-kB inhibitor) felhasználásával megvizsgáltuk a MAPK és NF-kB jelátviteli útvonalak szerepét a hidratálásban. Q-3-G-vel kezelt HaCaT-sejtek faktora. Az O-3-G-indukált génexpresszió alapján mind a TGM-1, mind az FLG szintje csökkent az SP600125-tel, egy JNK-gátlóval végzett kezelés hatására (3e. ábra), ami arra utal, hogy JNK szükséges az expresszió fokozásához. a TGM-1 és az FLG, az O-3-G bőrhidratáló hatása szempontjából. Ezenkívül az FLG expresszióját az IKK és IkB gátló Bay{35}} is csökkentette, ami arra utal, hogy a Q-3-G gyógyszerészeti mechanizmusa is az NF-kB jelátviteli útvonalhoz tartozhat.
2.3. A Q-3-G hidratálással kapcsolatos jelzési útvonalai az AP-1 és az NF-kB aktiválásán keresztül
A korábbi mRNS eredmények alapján feltételeztük, hogy az AP-1 és az NF-kB jelátvitel szerepe a Q-3-G hidratációs hatásában a fehérjeszintekben is megjelenhet. Western blot assay segítségével megvizsgáltuk az AP-1 és az NF-kB upstream molekuláinak foszforilációját. Először is, az AP-1 útvonalon a c-Jun foszforilációja megnőtt, miután HaCaT sejteket Q-3-G-vel 24 órán át inkubáltuk (4a. ábra). A p-INK szintje szintén emelkedett a Q-3-G 2,5, 5 és 10 μM koncentrációjú kezelés után. A JNK teljes formája változatlan maradt (4b. ábra). Tovább vizsgáltuk az MKK4 és a TAK-1 foszforilációját, amelyek a JNK upstream szabályozói. Ahogy a 3c. ábrán látható, a HaCaT-sejtek O-3-G-vel történő kezelése után a p-MKK4 és p-TAK1 fehérjeszintje is felfelé ívelt.


Az NF-kB jelátvitel mellett a Q-3-G növelte a p50 és a p65, az NF-kB alegységeinek foszforilációját (4c. ábra). Ezen túlmenően értékeltük az IKK és IkBa aktiválódását is, amelyeket szintén Q-3-G-vel 10 uM-ra növeltek a kontrollcsoporthoz képest (4d. ábra). Végül meghatároztuk az NF-kB jelátviteli útvonalban részt vevő upstream molekulák aktiválódását. Az Src és az Akt (Ser473) foszforilációját az O-3-G-kezelés fokozta (4e. ábra). Összességében ezek az adatok azt mutatják, hogy a Q-3-G bőrvédő hatása a TAK1 és Src aktivációját célozza meg a fehérjeszint növelésével, ezáltal az AP-1 és az NF-kB aktivitását.

2.4. A Q-3-G hatása az AP-1 és az NF-kB transzkripciós aktiválására
MTT vizsgálattal vizsgáltuk a Q-3-G sejt citotoxicitását humán embrionális vese sejtvonal HEK293T sejtjeiben (4f. ábra). A HEK293T sejtek életképessége nem változott szignifikánsan a Q-3-G(2.5-20 μM) kezelés után a kezeletlen sejtekhez képest.
Luciferáz vizsgálatot alkalmaztunk annak meghatározására, hogy a Q-3-G képes-e modulálni az NF-kB és AP-1 promóter vizsgálatokat. Megerősítettük, hogy az O-3-G koncentrációfüggő módon növelte az AP-1--közvetített luciferáz aktivitást (4g. ábra) és az NF-kB által közvetített luciferáz aktivitást (4h. ábra). Ezek az eredmények igazolják, hogy az AP-1 és az NF-KB aktiválása a Q-3-G fontos farmakológiai célpontja.
További információkért kattintson a linkre:https://www.xjcistanche.com/news/part-2-gyulladásgátló-antioxidáns-moistu-55118278.html


