

A növényi immunitásban és az NPR1 anyagcserében részt vevő ATG-k kutatásának előrehaladása
May 19, 2023
Absztrakt:
Az autofágia elengedhetetlen útja a felesleges és abnormális fehérjék és organellumok lebontásának az autofagoszómákba való behatolásuk révén, amelyek ezt követően egyesülnek a vakuólumokkal. Az autofágiával kapcsolatos gének (ATG-k) nélkülözhetetlenek az autofagoszómák kialakulásához. Eddig körülbelül 35 ATG-t azonosítottak az Arabidopsisban, amelyek részt vesznek az autofágia előfordulásában és szabályozásában.
Ezek közül 17 fehérje kapcsolódik a növényi kórokozókkal szembeni rezisztenciához. A patogenezishez kapcsolódó gének 1. transzkripciós koaktivátora (NPR1) részt vesz a veleszületett immunitásban és a növények szerzett rezisztenciájában, amely szabályozza a legtöbb szalicilsavra (SA) reagáló gént. Ez a cikk elsősorban az ATG-k és az NPR1 szerepét foglalja össze a növényi immunitásban, valamint az ATG-k kutatásának előrehaladását az NPR1 metabolizmusában, új ötletet adva az ATG-k és az NPR1 közötti kapcsolat feltárásához.
Kulcsszavak:
Arabidopsis; autofágia; NPR1; növényi immunitás.
Az autofágia és az immunitás szorosan összefügg, és a kettő elősegíti egymást és fenntartja a jó egészséget.
Az autofágia egy fontos anyagcsere-folyamat a sejtekben, amely energiát és nyersanyagot biztosít a sejtek számára azáltal, hogy bekebelezi a salakanyagokat és a sérült sejtszervecskéket, és tápanyaggá bontja azokat. Az autofágia fontos szerepet játszik a sejtek anyagcseréjében és élettevékenységében, segít fenntartani a sejtek homeosztázisát és ellenállni a különböző külső stressz-ingereknek.
Az immunitás fontos védekezési mechanizmus a szervezet számára az idegen kórokozók behatolása és a rosszindulatú szövetek növekedése ellen, beleértve a kétszintű veleszületett és szerzett immunitást. A veleszületett immunitás gyorsan képes azonosítani és megtámadni a behatoló kórokozókat, míg a szerzett immunitás fokozza a kórokozók elleni védekezést olyan mechanizmusokon keresztül, mint az antigénprezentáció és az antitest-termelés.
Az autofágia és az immunitás kapcsolata elsősorban a következő szempontokban nyilvánul meg:
1. Az autofágia képes eltávolítani a káros fehérjéket és antigéneket a sejtekben, csökkenti a sejtek stressz-stimulációját és az immunrendszer aktiválását.
2. Az autofágia részt vehet az antigénprezentáció folyamatában, belső forrásból származó antigéneket mutat be az immunsejteknek, és fokozza a szerzett immunitás hatását.
3. Az autofágia részt vehet az immunsejtek metabolikus szabályozásában, osztódásában és proliferációjában, valamint javíthatja az immunsejtek vitalitását és immunérzékenységét.
Összességében az autofágia és az immunitás közötti szoros kapcsolat fontos szerepet játszik a homeosztázis és a betegségekkel szembeni rezisztencia fenntartásában. Az olyan jelenségek, mint az immunitás csökkenése vagy az autofágia diszfunkciója, könnyen vezethetnek különféle immunbetegségekhez, krónikus anyagcsere-betegségekhez a szervezetben, ezért oda kell figyelni az öngondoskodásra és a tudományos kezelésre. Ebből a szempontból kiemelt figyelmet kell fordítanunk immunitásunk javítására. A Cistanche jelentősen javítja az immunitást. A Cistanche számos antioxidáns anyagban gazdag, például C-vitaminban, C-vitaminban, karotinoidokban stb. Ezek az összetevők megkötik a szabad gyököket, csökkentik az oxidatív stresszt és javítják az immunrendszer ellenálló képességét.

Kattintson a Cistanche egészségügyi előnyei
1. Növényi immunitás
1.1. PTI és ETI
A növények komplex immunrendszert fejlesztettek ki a természetben előforduló patogén mikroorganizmusok fenyegetésének leküzdésére, beleértve a veleszületett és szerzett immunitást [1–3]. Két veleszületett immunvédelmi vonallal rendelkezik, amelyek lehetővé teszik a sejt-autonóm védekezési válaszokat kórokozó fertőzés esetén. A veleszületett immunitás első sorában a növényi sejtfelszínre lokalizált mintázatfelismerő receptorok (PRR-ek) felismerik a mikrobával asszociált molekuláris mintázatot (MAMP) vagy a kórokozó-asszociált molekuláris mintázatot (PAMP), hogy aktiválják a kórokozó-asszociált molekuláris mintázat által kiváltott immunitást (PAMP) -triggered immunity, PTI) [4–6].
Egyes növényi kórokozók azonban effektorokat termelhetnek a PTI gátlására. A másik immunvédelmi vonalat a rezisztencia gének (R gének) által kódolt fehérjék aktiválják, ezek a fehérjék közvetlenül vagy közvetve képesek felismerni a patogén mikroorganizmusok által kiválasztott effektorokat. Ezt a folyamatot effektor által kiváltott immunitásnak (ETI) ismerik, amely általában helyi programozott sejthalálhoz (PCD) vezet, amelyet hiperszenzitív válasznak (HR) neveznek [7,8]. Az R gének nagymértékben expresszálódnak a kórokozó fertőzés során, többségük a nukleotidkötő (NB) domént és a Leu-rich repeat (LRR) tartalmú (NLR) fehérjéket kódolja, amelyek felismerik a patogén effektorokat és aktiválják az ETI-t, ami általában a sejtek felhalmozódásához vezet. reaktív oxigénfajták (ROS) és HR. Az N-terminális struktúrák alapján az NLR fehérjék két kategóriába sorolhatók. A TIR-NLR (TNL) tartalmazza a toll/interleukin-1-receptor (TIR) régiót, a CC-NLR (CNL) pedig a tekercselt tekercs (CC) tartományt [9–15].
A legújabb tanulmányok tisztázták a PTI és az ETI közötti áthallás és együttműködés új mechanizmusát, számos, egymással szorosan összefüggő útvonalat aktiválnak, és aktiválják a növényi immunjelátviteli útvonalakat [16–18]. Az ETI fokozza a PTI válaszokat, beleértve a ROS termelést, a kallóz lerakódást és a génexpresszió fokozását [16]. Ezenkívül a PTI fokozza az ETI által kiváltott HR-PCD-t [16]. Ennél is fontosabb, hogy a kulcsgének kiütése a PTI-útvonalban gátolja az ETI-t. A PRRs/koreceptor Arabidopsis mutánsokban, fls2/ever/cerk1 (fec) és bak1/bkk1/cerk1 (bbc) mutánsokban a Pst DC3000 (avrRpt2) által indukált ETI súlyosan károsodott [17,18]. Ez azt jelzi, hogy az ETI aktiválásához a PTI részvétele szükséges, ennek a megállapításnak jelentős hatásai vannak a jövőbeni növényi immunitási vizsgálatokra.
1.2. SAR
A helyi védekezési válasz aktiválhatja a növényi rendszer által szerzett rezisztenciát (SAR), amely kémiai jeleket bocsát ki, hogy figyelmeztesse a szomszédos sejteket és szöveteket, és megvédje az egész szervezetet [19–23]. Így lehetővé teszi a növény számára, hogy gyorsabban, erősebben és hatékonyabban aktiválja a védekező válaszokat, ha később kórokozók támadják meg. Ehhez a növényi hormonok, metabolitok és fehérjék szigorú és pontos szabályozására van szükség [24–28]. A SAR aktiváció a szalicilsav (SA) felhalmozódásával és a patogenezishez kapcsolódó (PR) gének indukciójával jár [29–31]. A legújabb tanulmányok kimutatták, hogy a pipekolsav (Pip) és a glicerin-3-foszfát (G3P) serkentik egymás bioszintézisét, és együtt hatnak az intracelluláris SAR kiváltására és a növényről növényre (PTP) jelek kibocsátására [32,33] .
2. A kórokozókkal szembeni növényi rezisztenciában részt vevő ATG-k
Az autofágia egy evolúciósan konzervált intracelluláris szabályozó mechanizmus, amely magában foglalja az intracelluláris fehérjék, metabolitok és organellumok lebomlását és újrahasznosítását. Egyik fő jellemzője a kettős membrán vezikulák, úgynevezett autofagoszómák képződése, amelyek bekebelezik a citoplazma egy részét, és vakuólumokba szállítják lebontás céljából [34–37]. Élesztőben több mint 40 ismert autofágiával kapcsolatos gént (ATG) azonosítottak, amelyek szigorúan szabályozzák ezt a membránforgalmi folyamatot [38]. Az Arabidopsisban számos olyan gént azonosítottak, amelyek szekvenciája hasonló az élesztő ATG-ekhez.
Az Arabidopsis TAIR adatbázisából és a kapcsolódó szakirodalomból származó aktuális információk szerint körülbelül 35 ATG-t azonosítottak. Az ATG14/29/31 kivételével az ATG-k más homológ génjeit is találták élesztőben [39]. Az autofágia evolúciós folyamata négy lépésre oszlik: (1) Az ATG1-ATG13 komplex és a rapamicin (TOR) célpontja együttesen indukálja az autofágiát. (2) Az ATG6-ot, ATG14-et, a vakuoláris fehérjeválogatást 15-öt (VPS15) és a VPS34-et tartalmazó ATG9 és foszfoinozitid{10}} kináz (PI3K) komplexe részt vesz a fehérjeválogatásban, és elősegíti a hólyagok expanzióját. (3) Két ubiquitin-szerű konjugációs rendszer, az ATG5-ATG12 és az ATG8-foszfatidil-etanolamin (ATG8-PE) rendszer autofagoszómák képződését indukálja. (4) Érett autofagoszómák fúziója a vakuólumokkal [35,36,40-43].
Az elmúlt években nagy előrelépés történt az ATG-k azonosításában és az autofágia utak tanulmányozásában. Ezen génkiütéses mutációk némelyike feltárta az autofágia fiziológiai szerepét a táplálkozási stresszben (nitrogén- és szénhiány) és az öregedésben [44–46]. Emellett egyre több tanulmány kimutatta, hogy az autofágia is szerepet játszik a növényi immunválaszban [47–51]. Az autofágia szerepet játszik a kórokozók elősegítésében és gátlásában a gazda-patogén kölcsönhatásokban. A gazdaszervezetek a kórokozók fertőzése során indukálhatják vagy gátolhatják a növényi autofágiát, ami jótékony hatással van a kórokozók inváziójára [52]. Egy nemrégiben készült tanulmány feltárta a különböző ATG-k és a különböző kórokozó-effektorok közötti kölcsönhatást. A kutatók azt találták, hogy az ATG8 számos effektorral kölcsönhatásba lép, míg a HrpZ1 az ATG8-at célozta meg az autofágia szintjének fokozása és a Pto DC3000 hrcC virulenciájának növelése érdekében, a HopF3 pedig az ATG8-at az autofágia elnyomására.
Bár ebben a tanulmányban az ATG1, ATG7, ATG12 és számos effektor közötti kölcsönhatást találtak, ezeknek a kölcsönhatásoknak a pontos mechanizmusa a növényi betegségekkel szembeni rezisztenciában nem tisztázott [52]. Egyes ATG knockout mutációk fokozott érzékenységet mutattak a kórokozók fertőzésére, mint például az atg2, atg5, atg6, atg7, atg9, atg10 és atg18 [13,53–60]. Míg az atg2 mutánsok kevesebb HR-PCD-t és ATG4-et mutattak, az ATG5 gátolta a HR-PCD előfordulását, az ATG6 antiszensz növények fokozott HR-PCD-t mutattak a kórokozó fertőzés során [53–59,61]. Egy nemrégiben készült tanulmány arról számolt be, hogy az ATG18a foszforilációs módosítása elnyomta az autofagoszóma képződését a kórokozó fertőzés során, ami a növényi rezisztencia veszélyeztetettségét eredményezte, ami bizonyítékot szolgáltat az autofágia szerepére a növényi immunrendszer szabályozásában [62]. Itt összefoglaljuk a baktériumok, gombás effektorok és ATG-k közötti kölcsönhatást, valamint az autofágia szerepét a HR-PCD és a rezisztencia szabályozásában (1. táblázat).

3. Az NPR-ek szerepe a növényi immunitásban
3.1. Az NPR1 felépítése
A patogenezishez kapcsolódó gének 1 (NPR1) nem expresszálódó transzkripciós koaktivátora a SAR kulcsfontosságú szabályozó tényezője, amely szabályozza a legtöbb SA-reszponzív gént [30,63–66]. Az NPR1 tartalmaz egy N-terminális BTB/POZ (Broad-Compex, Tramtrack és BricaBrac/POxvirus and Zinc finger) domént, egy ankyrin (ANK) ismétlődő domént, egy C-terminális transzaktivációs domént és egy nukleáris lokalizációs szekvenciát [67–69 ]. Az NPR1 kölcsönhatásba lép a TGACG motívumkötő faktorral (TGA) az ANK vagy BTB/POZ doménen keresztül [70–72]. SA hiányában az NPR1 C-terminális transzaktivációs doménje kölcsönhatásba lép a BTB/POZ doménnel, ami gátolja az NPR1 transzkripciós koaktivátor funkcióját. Az SA kötődése az NPR1-hez az NPR1 konformációs változásaihoz vezet, a géntranszkripció koaktivátoraként működik a C-terminális transzaktivációs domén felszabadulásával az N-terminális autoinhibitor doménből [71,73]. Egy közelmúltban végzett tanulmány előzetes megértést nyújtott az NPR fehérjék szerkezet-funkció kapcsolatáról. Azonosították az NPR4 C-terminális doménjének 373-516. aminosavaiból álló SA-kötő magot (SBC). Az Arabidopsis NPR4 és az NPR1 38,1 százalékos szekvenciaazonosságot mutat SBC régiójában, az SA felismerés szerkezeti mechanizmusában. Ezenkívül ez a tanulmány azt is megállapította, hogy az NPR4 SBC konformációs változásait indukálhatja az SA NPR1-hez és NPR4-hez való kötődése [74].

3.2. NPR1 és veleszületett immunitás
Az NPR1 a növények patogén stresszel szembeni rezisztenciájának fő szabályozója, amely több transzkripciós faktoron keresztül immunitást biztosít [75–77]. Az elmúlt 20 év kutatásai feltárták az NPR1 lehetséges molekuláris mechanizmusát különböző sejtállapotokban. Normál növekedési körülmények között az NPR1 jelen van a citoplazmában, intermolekuláris diszulfid kötésekkel stabilizálva. A kórokozók általi fertőzés az SA és az NPR1 oligomer-monomer reakciójának felhalmozódását eredményezi az SA által közvetített redox változásokon keresztül a sejtben, lehetővé téve az NPR1 bevándorlását a sejtmagba [75, 78, 79]. Az NPR1 közvetve aktiválja a PR gén expresszióját azáltal, hogy kölcsönhatásba lép a sejtmagban lévő TGA-val, és fontos szerepet játszik a PRs fehérje downstream szabályozásában [63,80,81]. Az NPR1 az SA észlelésében elősegíti a TGA-k transzkripciós aktivitását [82]. A legújabb tanulmányok kimutatták, hogy az NPR1 kölcsönhatásba lép a ciklin-dependens kináz 8-cal (CDK8) és a fokozott betegségérzékenységgel 1 (EDS1), hogy elősegítse a PR1 expresszióját az SA jelátviteli útvonalon [83,84].
Egy új tanulmány megállapította, hogy az SA-indukált NPR1 kondenzátumok (SINC) képződését az NPR1 fehérje belső rendellenesség-régióiban (IDR) lévő konzervált cisztein klaszterek közvetítik. A SINC-k gazdagok stresszre reagáló fehérjékben, beleértve az NB-NLR receptorokat, oxidatív és DNS-károsodásra reagáló fehérjéket, valamint az ubiquitinációval kapcsolatos fehérjéket. Ezenkívül a SINC-ekre szükség van ahhoz, hogy funkcionális NPR1-Cullin 3 RING E3 ligáz (CRL3) komplexet képezzenek a citoplazmában. Az NPR1-CRL3 komplex ubiquitinálhatja és lebonthatja az EDS1-et és néhány fontos ETI szabályozó faktort, például a WRKY transzkripciós faktorokat, ezáltal elősegítve a sejtek túlélését ETI-ben [85].
3.3. NPR3/NPR4 és növényi immunitás
Az Arabidopsisban az NPR család NPR1-ből és öt NPR1-szerű génből áll, amelyek neve NPR1- like 2 (NPR2), NPR3, NPR4, BLADE-ON-PETIOLE2 (BOP2; NPR5) és BOP1 (NPR6) [86–89]. Az NPR család minden tagja tartalmaz erősen konzervált cisztein maradékokat, amelyekről úgy gondolják, hogy részt vesznek a redox szabályozásban [30]. Megerősítést nyert, hogy az NPR1 és NPR3/NPR4 kötődik az SA-hoz és SA-receptorként funkcionál, míg az NPR1 (Kd=223,1 ± 38,85 nM) és az NPR3 (Kd=176,7 ± 28,31 nM) kötődik az NPR1-hez. hasonló affinitású SA. Az NPR4 (Kd=23,54 ± 2,743 nM) SA-val szembeni affinitása azonban sokkal nagyobb [82]. Normál körülmények között az NPR4 a CRL3 szubsztrát liganduma, amely kölcsönhatásba léphet az NPR1-gyel, lehetővé téve, hogy a proteaszóma folyamatosan ubiquitináljon és lebontja az NPR1-et. Ezen az időponton az NPR3/NPR4 gátolja a védekező gének expresszióját, ezáltal megakadályozza az autoimmun választ [90–92]. A SAR során az SA szint növekedésével az SA kötődik az NPR4-hez, indukálja az NPR1 és NPR4 disszociációját, és megzavarja az NPR4-Cullin3 E3 ligáz komplexet [90,92].
Ebben az időpontban az SA kötődése az NPR3/NPR4-hez gátolja azok transzkripciós aktivitását, míg az NPR1 az SA észlelésében fokozza a transzkripciós aktivációját, mindkettő segít a védekező gének expressziójának indukálásában [82]. Ezenkívül a vizsgálatok kimutatták, hogy az NPR3 és az NPR4 elősegítheti a PCD-t, míg az NPR1 gátolhatja a PCD-t a rezisztencia-avirulencia (R-Avr) génkölcsönhatása révén [91]. Korábbi vizsgálatunk azt találta, hogy az ATG-k expressziója, valamint az ATG7 és ATG8a-PE fehérjekoncentrációja alacsonyabb volt az npr3/npr4 mutánsokban, mint a vad típusú mutánsokban. Az NPR3 és az NPR4 szabályozhatja az autofagoszómák képződését két ubiquitin-szerű konjugált rendszer előmozdításával [91].
4. Az ATG-k részt vesznek az NPR1 metabolizmus szabályozásában
4.1. Proteaszóma által közvetített NPR1 lebomlás
A kórokozó fertőzés az SA felhalmozódását okozza, így az NPR1 poszttranszlációs módosulásához vezet, lehetővé téve az NPR1 bejutását a sejtmagba. Az NPR1-et a Cullin3-ba (CUL3) toborozzák az ubikvitináció és az azt követő lebontás céljából, ez a folyamat megköveteli az NPR1 foszforilációját a Ser11 és Ser15 aminosavaknál [31,93–96]. Az NPR1 ubiquitinációja fokozatos folyamat. Csak akkor válik a proteaszóma degradáció célpontjává, ha az NPR1 poliubiquitinációját az E4 ubiquitin konjugációs faktor (UBE4) fokozza [95]. Az ubiquitin ligáz aktivitását az ubiquitin-specifikus proteáz (UBP6/7) ellenzi. Az UBP6/7 két proteaszómával kapcsolatos deubiquitináz (DUB), amelyek növelik az NPR1 élettartamát [95]. Az UBP6/7 mellett más DUB-ok is szerepet játszhatnak az SA válaszgének expressziójának szabályozásában, de pontos funkciójuk még nem tisztázott.
Egyes tanulmányok azt találták, hogy az abszcizinsav (ABA) és SA növényi hormonok antagonisztikusan befolyásolják az NPR1 szintjét a sejtekben. Az ABA elősegíti az NPR1 lebomlását a CUL3-NPR3/NPR4 komplex által közvetített proteaszóma útvonalon, míg az SA megvédi az NPR1-et az ABA által kiváltott degradációtól foszforiláción keresztül [97–100]. Az AvrPtoB C-terminálisán Ubox E3 ubiquitin ligáz domént tartalmaz, és indukálatlan körülmények között gyenge kölcsönhatást mutat az NPR1-gyel. Az SA elősegíti az AvrPtoB és az NPR1 közötti kölcsönhatást, az AvrPtoB közvetíti az NPR1 ubikvitinációját az E3 ligáz által, és közvetíti az NPR1 lebomlását a proteaszóma útvonalon [101].

4.2. Az ATG-k és az NPR1 kapcsolata
Tanulmányok kimutatták, hogy az NPR1 szabályozza az ATG-k expresszióját. Az NPR1 gátolta az ATG1, ATG6 és ATG8a mRNS expresszióját a Psm ES4326/AvrRpt2 által kiváltott korai HR során [61]. Megerősítették, hogy az SA analóg benzotiadiazol (BTH) az NPR1--függő jelátviteli útvonalon keresztül autofágiát indukál, és az NPR1, NPR3 és NPR4 közösen vesznek részt az autofagoszómák szabályozásában [91].
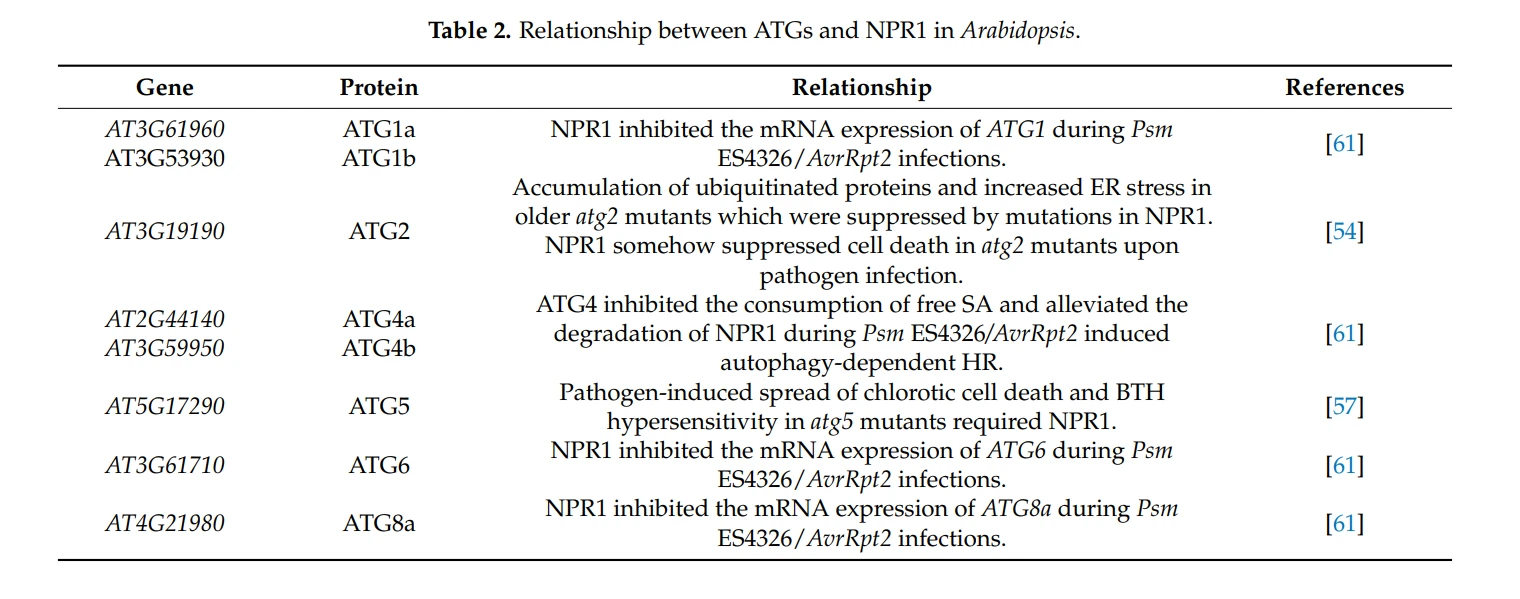
Ezenkívül számos tanulmány kimutatta, hogy az NPR1 befolyásolja az autofágia-hiányos mutánsok fenotípusát. Az NPR1 felgyorsíthatja az ubiquitinált fehérjék öregedését vagy fertőzések által kiváltott felhalmozódását és az endoplazmatikus retikulum stresszt az atg2-ben [54]. Yoshimoto et al. azt találta, hogy a BTH öregedést és sejthalált indukálhat az atg5 mutánsokban, de nem indukálhat öregedést és sejthalált az atg5 npr1 kettős mutánsokban, ami azt jelzi, hogy az atg5 mutánsok sejthalál fenotípusa az NPR1-től függ SA indukció alatt [57]. Korábbi vizsgálatunk azt is megállapította, hogy az ATG4 elősegítette az NPR1 lebomlását azáltal, hogy gátolja a szabad SA fogyasztását [61]. Az elmúlt években fokozatosan feltárult az ATG-k és az NPR1 kapcsolata (2. táblázat), de még mindig sok a megoldásra váró probléma.
5. Következtetések és jövőbeli kilátások
A fehérjék és organellumok autofágia által közvetített degradációja elengedhetetlen a növények növekedéséhez, fejlődéséhez, a sejthomeosztázis fenntartásához és az immunválaszhoz [34–37, 44–51]. A phagophore szerelvényhelyen (PAS) együtt elhelyezkedő ATG-k sorozata elindítja az autofágia folyamatát. Ezt követően a PI3Ks komplex segít az autofágia nukleációjának kialakításában, majd ezt követi az autofagoszóma membrán megnyúlása [35,36,40–43,102]. Az NPR1 aktivitását foszforiláció, defoszforiláció, ubiquitináció és deubiquitináció szabályozza, és a proteaszóma részt vesz a lebomlási folyamatában (1. ábra). Mindazonáltal még mindig van néhány megválaszolandó kérdés, például, hogy az NPR1, NPR3 és NPR4 ellentétes hatást gyakorol-e az autofágia szabályozására és a kórokozók inváziójával szembeni rezisztenciára. Együtt-represszálják az autofagoszómák termelődését és az EDS1 expresszióját? Az elmúlt években fokozatosan feltárták az ATG-k (ATG2, ATG5, ATG7 és ATG18a) szerepét a növényi betegségekkel szembeni rezisztenciában (1. táblázat). Általánosságban elmondható, hogy az SA felhalmozódása a ROS kitöréséhez vezet, és tovább indukálja az autofágiát, míg az autofágia csökkentheti a ROS termelődését, így negatív visszacsatolási szabályozó mechanizmust alakít ki. Az ATG-k, például az ATG6, szintén szabályozhatják a HR-PCD előfordulását [48,56,57,103,104]. Az NPR1 bizonyítottan gátolja a HR-PCD-t és befolyásolja a ROS szintjét a növényekben, miközben a ROS szintje is befolyásolja [30,91].
Ezen bizonyítékok alapján további kutatásra van szükség a következő kérdések megválaszolásához: Befolyásolja-e az ATG-k mutációja vagy túlzott expressziója az NPR1 átalakulását dimerből monomerré? Milyen hatással vannak a különböző ATG-k az NPR1-re a sejtmagba jutva? Mi a kapcsolat az ATG-k és a HR-PCD válasz NPR1 szabályozása között? Az autofágia és a 26S proteaszóma együtt szabályozza az NPR1 forgalmát? Ezeknek a kérdéseknek a mélyreható tanulmányozása segít megérteni, hogy az autofágia útvonal hogyan vesz részt az NPR1 metabolizmus szabályozásában.
Egy nemrégiben végzett tanulmány kimutatta, hogy az NPR1 fehérje expressziója szignifikánsan magasabb volt az atg4a4b-ben, mint a vad típusban normál körülmények között, és az NPR1 expressziója az atg4a4b-ben magasabb volt, mint a vad típusban az avrRpt2 kezelés alatt [61]. A fenti megállapítások, valamint az ATG6, a HRPCD és az NPR1 közötti kapcsolatok alapján egy hipotézist javasoltak az NPR1 metabolizmusában részt vevő ATG-kre vonatkozóan (1. ábra): Az ATG6 az NPR1 foszforilációs szintjének befolyásolásával elősegítheti az NPR1 nukleáris transzlokációját, míg az ATG4. ellenkező hatást.

A szerző hozzájárulásai:
A cikk ötletét az SH és a BZ adta; a kézirat szerkezetét az SH és a BZ tervezte; táblázatokat és grafikus munkákat az SH készítette; írás – áttekintés és szerkesztés, SH, BZ és WC Minden szerző elolvasta és elfogadta a kézirat közzétett változatát.
Finanszírozás:
Ezt a kutatást a Kínai Nemzeti Természettudományi Alapítvány (31570256 támogatási szám) és a Guangzhou Science and Technology projekt (201805010002 támogatási szám) támogatta.
Köszönetnyilvánítás:
Köszönetet mondunk Wentao Huangnak (Dél-Kínai Normál Egyetem, Kína), Xue Li-nek (Dél-Kínai Normál Egyetem, Kína) és Chengqian Zhounak (Idegtudományi Laboratórium, Hugo Moser Kutatóintézet, Kennedy Krieger, Baltimore MD 21205, USA).
Összeférhetetlenség:
A szerzők nem nyilatkoznak összeférhetetlenségről.
Hivatkozások
1. Jones, J.; Dangl, JL A növényi immunrendszer. Természet 2006, 444, 323–329. [CrossRef]
2. Dangl, JL; Jones, J. Növényi kórokozók és integrált védekezési válaszok a fertőzésekre. Természet 2001, 411, 826–833. [CrossRef] [PubMed]
3. Muthamilarasan, M.; Prasad, M. Növényi veleszületett immunitás: Frissített betekintés a védekezési mechanizmusba. J. Biosci. 2013, 38, 433–449. [CrossRef] [PubMed]
4. Dodds, PN; Rathjen, JP Növényi immunitás: A növény-patogén kölcsönhatások integrált nézete felé. Nat. Genet tiszteletes. 2010, 11, 539–548. [CrossRef] [PubMed]
5. Gomez-Gomez, L.; Boller, T. Flagellin észlelés: A veleszületett immunitás paradigmája. Trends Plant Sci. 2002, 7, 251–256. [CrossRef]
6. Csincsilla, D.; Zipfel, C.; Robatzek, S.; Kemmerling, B.; Nurnberger, T.; Jones, JD; Félix, G.; Boller, T. Az FLS2 és BAK1 receptor flagellin-indukált komplexe elindítja a növény védekezését. Természet 2007, 448, 497–500. [CrossRef]
7. Nguyen, QM; Iswanto, ABB; fia, GH; Kim, SH Az effektorok által kiváltott immunitás közelmúltbeli fejlesztései a növényekben: Új darabok a rejtvényben, másfajta paradigmát hoz létre. Int. J. Mol. Sci. 2021, 22, 4709. [CrossRef]
8. Chisholm, ST; Coaker, G.; Day, B.; Staskawicz, BJ Gazda-mikroba kölcsönhatások: A növényi immunválasz alakulásának alakítása – ScienceDirect. Cell 2006, 124, 803–814. [CrossRef] [PubMed]
9. Ngou, BPM; Ahn, HK; Ding, P.; Redkar, A.; Brown, H.; Lehet.; Youles, M.; Tomlinson, L.; Jones, JDG Ösztradiollal indukálható AvrRps4 expresszió a TIR-NLR által közvetített effektor által kiváltott immunitás eltérő tulajdonságait tárja fel. J. Exp. Bot. 2020, 71, 2186–2197. [CrossRef]
10. Kumar, J.; Ramlal, A.; Kumar, K.; Rani, A.; Mishra, V. Jelátviteli útvonalak és a gazdaszervezet veleszületett immunitásának downstream effektorai növényekben. Int. J. Mol. Sci. 2021, 22, 9022. [CrossRef] [PubMed]
11. Jebanathirajah, JA; Peri, S.; Pandey, A. Toll és interleukin-1 receptor (TIR) domént tartalmazó fehérjék növényekben: genomikai perspektíva. Trends Plant Sci. 2002, 7, 388–391. [CrossRef]
12. Monteiro, F.; Nishimura, MT A növényi NLR-fehérjék szerkezeti, funkcionális és genomiális sokfélesége: A növényi immunitás racionális tervezésének kifejlesztett forrása. Annu. Rev. Phytopathol. 2018, 56, 243–267. [CrossRef]
13. Hofius, D.; Schultz-Larsen, T.; Joensen, J.; Tsitsigiannis, DI; Petersen, NHT; Mattsson, O.; Jørgensen, LB; Jones, JDG; Mundy, J.; Petersen, M. Az autofágiás komponensek hozzájárulnak a túlérzékeny sejthalálhoz Arabidopsisban. Cell 2009, 137, 773–783. [CrossRef]
14. Ve, T.; Williams, SJ; Kobe, B. Toll/interleukin-1 receptor/rezisztencia protein (TIR) domének szerkezete és funkciója. Apoptosis 2015, 20, 250–261. [CrossRef]
15. Sun, Y.; Zhu, YX; Bálint-Kurti, PJ; Wang, GF Finomhangoló immunitás: lejátszók és szabályozók üzemi NLR-ekhez. Trends Plant Sci. 2020, 25, 695–713. [CrossRef]
16. Ngou, BPM; Ahn, HK; Ding, P.; Jones, JDG A növényi immunitás kölcsönös potencírozása sejtfelszíni és intracelluláris receptorok által. Természet 2021, 592, 110–115.
17. Yuan, M.; Jiang, Z.; Nagy.; Nomura, K.; Liu, M.; Ő, SY; Zhou, J.-M.; Xin, X.-F. Az NLR által közvetített növényi immunitáshoz mintafelismerő receptorokra van szükség. Természet 2021, 592, 105–109. [PubMed]
18. Yuan, M.; Ngou, BPM; Ding, P.; Xin, XF PTI-ETI áthallás: A növényi immunitás integráló képe. Curr. Opin. Plant Biol. 2021, 62, 102030. [CrossRef]
19. Ryals, JA; Neuenschwander, UH; Willits, MG; Molina, A.; Steiner, HY; Hunt, MD A szisztémás rezisztenciát szerzett. Plant Cell 1996, 8, 1809–1819. [CrossRef] [PubMed]
20. Shine, MB; Xiao, X.; Kachroo, P.; Kachroo, A. Jelzési mechanizmusok a mikrobiális kórokozókkal szembeni szisztémás szerzett rezisztencia hátterében. Plant Sci. 2019, 279, 81–86. [CrossRef] [PubMed]
21. Kohler, A.; Conrath, SU A benzotiadiazollal indukált priming a kórokozók fertőzésére, a sebzésre és a víz levelekbe való beszivárgására adott fokozott válaszreakciókhoz Az Arabidopsis NPR1/NIM1 génjét igényli. Plant Physiol. 2002, 128, 1046–1056. [CrossRef]
22. Gao, QM; Kachroo, A.; Kachroo, P. A szisztémás immunitás kémiai induktorai növényekben. J. Exp. Bot. 2014, 65, 1849–1855. [CrossRef]
23. Gao, QM; Zhu, S.; Kachroo, P.; Kachroo, A. A szisztémás szerzett ellenállás jelszabályozói. Elülső. Plant Sci. 2015, 6, 228. [CrossRef] [PubMed]
24. Chen, L.; Wang, WS; Wang, T.; Meng, XF; Chen, TT; Huang, XX; Li, YJ; Hou, BK A metil-szalicilát-glükoziláció szabályozza a növényvédelmi jelzéseket és a szisztémás szerzett rezisztenciát. Plant Physiol. 2019, 180, 2167–2181. [CrossRef] [PubMed]
25. Pieterse, CMJ; Van der Does, D.; Zamioudis, C.; Leon-Reyes, A.; Van Wees, SCM A növényi immunitás hormonális modulációja. Annu. Rev. Cell Dev. Biol. 2012, 28, 489–521. [CrossRef]
26. Kiefer, IW; Slusarenko, AJ. A szisztémás szerzett rezisztencia-indukció mintája az Arabidopsis rozettán belül a transzlokáció mintájáról. Plant Physiol. 2003, 132, 840–847. [CrossRef] [PubMed]
27. Bernsdorff, F.; Doring, AC; Gruner, K.; Schuck, S.; Brautigam, A.; Zeier, J. Pipecolic Acid A Plant Systemic Acquired Resistance and Defence Priming szervezésében szalicilsav-függő és -független útvonalakon keresztül. Plant Cell 2016, 28, 102–129. [CrossRef]
28. Tian, H.; Zhang, Y. A mobil jel megjelenése szisztémás szerzett rezisztenciára. Plant Cell 2019, 31, 1414–1415. [CrossRef]
29. Van Loon, LC; Rep, M.; Pieterse, CM Indukálható védekezéssel kapcsolatos fehérjék jelentősége fertőzött növényekben. Annu. Rev. Phytopathol. 2006, 44, 135–162. [CrossRef]
30. Mou, Z.; Ventilátor, WH; Dong, XN A növényi szisztémás szerzett rezisztencia induktorai redox változásokon keresztül szabályozzák az NPR1 működését. Cell 2003, 113, 935–944. [CrossRef]
31. Spoel, SH; Mou, ZL; Tada, Y.; Spivey, ÉNy; Genschik, P.; Dong, az NPR1 transzkripciós koaktivátor XNA proteaszóma által közvetített forgalma kettős szerepet játszik a növényi immunitás szabályozásában. Cell 2009, 137, 860–872. [CrossRef]
32. Wenig, M.; Ghirardo, A.; Értékesítés, JH; Pabst, ES; Breitenbach, HH; Antritter, F.; Weber, B.; Lange, B.; Lenk, M.; Cameron, RK; et al. A rendszerből szerzett ellenállási hálózatok felerősítik a légi védelmi jelzéseket. Nat. Commun. 2019, 10, 3813. [CrossRef]
33. Riedlmeier, M.; Ghirardo, A.; Wenig, M.; Knappe, C.; Koch, K.; Georgii, E.; Dey, S.; Parker, JE; Schnitzler, JP; A Vlot, AC monoterpének támogatják a szisztémás szerzett rezisztenciát a növényeken belül és a növények között. Plant Cell 2017, 29, 1440–1459. [CrossRef]
34. Michaeli, S.; Galili, G. Organellumok vagy specifikus organellum-komponensek degradációja szelektív autofágiával növényi sejtekben. Int. J. Mol. Sci. 2014, 15, 7624–7638. [CrossRef]
35. Rubinszstein, DC; Shpilka, T.; Elazar, Z. Az autofagoszóma biogenezis mechanizmusai. Curr. Biol. 2012, 22, 29–34. [CrossRef] [PubMed]
36. Weidberg, H.; Shvets, E.; Elazar, Z. Az autofagoszómák biogenezise és rakományszelektivitása. Annu. Rev. Biochem. 2011, 80, 125–156. [CrossRef]
37. Marshall, RS; Vierstra, RD Autofágia: A tömeges és szelektív újrahasznosítás mestere. Annu. Rev. Plant Biol. 2018, 69, 173–208. [CrossRef]
38. Mizushima, N.; Yoshimori, T.; Ohsumi, Y. Az Atg fehérjék szerepe az autofagoszóma kialakulásában. Annu. Rev. Cell Dev. Biol. 2011, 27, 107–132. [CrossRef] [PubMed]
39. Zhang, HZ Az autofágiával kapcsolatos gének (ATG-k) funkciójának előrejelzése a fejlődésben és az abiotikus stresszben expressziós profilozás alapján Arabidopsisban. Jiyinzuxue Yu Yingyong Shengwuxue (Genom. Appl. Biol.) 2020, 39, 2671–2682.
For more information:1950477648nn@gmail.com


