

SARS-CoV-2-Speciális immunválasz és a COVID patogenezise-19 1. rész
Apr 26, 2023
Absztrakt:
Az áttekintés célja, hogy megszilárdítsa a koronavírus-betegség (COVID{0}}) kórokozója, a súlyos akut légúti szindróma koronavírus 2 (SARS-CoV-2) molekuláris mechanizmusaira, virulenciájára és patogenitási jellemzőire vonatkozó kutatási eredményeket, valamint ezek relevanciáját. az akut vírusfertőzés kialakulásának négy tipikus szakaszába. Ez a négy szakasz az invázió; a vírusellenes veleszületett immunitás elsődleges blokádja; a vírus védekező mechanizmusainak bekapcsolása az adaptív immunitás tényezői ellen; és a COVID akut, hosszú távú szövődményei-19. Az inváziós szakasz magában foglalja a SARS-CoV-2 célsejt-receptorok tüskés fehérjéjének (S) felismerését, nevezetesen a fő receptort (angiotenzin-konvertáló enzim 2, ACE2), annak koreceptorait és a lehetséges alternatív receptorokat.
A receptorok változatos repertoárjának jelenléte lehetővé teszi, hogy a SARS-CoV{1}} különféle típusú sejteket fertőzzen meg, beleértve azokat is, amelyek nem expresszálnak ACE2-t. A második szakaszban a fertőzött sejtekben szintetizálódó SARS-CoV-2 polifunkcionális szerkezeti, nem strukturális és extra fehérjék többsége részt vesz a vírusellenes veleszületett immunitás elsődleges gátlásában.
Az ezeket a patogén tényezőket jellemző nagyfokú redundancia és szisztémás hatás lehetővé teszi a SARS-CoV-2 számára, hogy legyőzze az antivirális mechanizmusokat az invázió kezdeti szakaszában. A harmadik szakasz magában foglalja a vírus passzív és aktív védelmét az adaptív immunitás tényezőitől, a gyulladás fókuszában lévő barrier funkció leküzdését, valamint a SARS-CoV-2 általánosítását a szervezetben. A negyedik szakasz a COVID akut és hosszú távú szövődményeinek különböző változataihoz kapcsolódik-19. A SARS-CoV-2 azon képessége, hogy indukálja a szöveti invázió autoimmun és autoinflammatorikus útjait, valamint a szisztémás gyulladás immunszuppresszív és hiperallergiás mechanizmusainak kialakulását, kritikus fontosságú a fertőzés ezen szakaszában.
A gyulladás a szervezet immunrendszerének védekező válasza a külső agresszióra, amely olyan tünetekben nyilvánul meg, mint a helyi fájdalom, bőrpír, duzzanat és hőség. Amikor a szervezet fertőzött vagy sérült, az immunrendszer gyulladásos reakciót vált ki a kórokozók eltávolítására vagy a szövetek sérülésére, ezáltal helyreállítja a szövetek szerkezetét és működését. Az immunrendszer gyulladásos mediátorokat is felszabadít, amelyek kölcsönhatásban gyulladást okoznak. Ezek a mediátorok közé tartoznak az interleukinek, a tumornekrózis faktorai és az interferonok, amelyek gyulladást okoznak, és más immunsejteket, például fehérvérsejteket vonzanak a kórokozók megtámadására vagy a szövetek újjáépítésére. A mindennapi életben nagyobb figyelmet kell fordítanunk az immunitás javítására. A Cistanche jelentős hatással van az immunitás javítására. A húsban található poliszacharidok szabályozhatják az emberi immunrendszer immunválaszát, javíthatják az immunsejtek stressz-képességét és erősíthetik az immunrendszert. Az immunsejtek baktericid hatása.

Kattintson a cistanche tubulosa előnyeinek megismeréséhez
Kulcsszavak:
adaptív immunitás; autoimmunitás; sejtes stressz; citokinek; interferonok; COVID{1}} utáni szindróma; receptorok; SARS-CoV-2; szuperantigének; szisztémás gyulladás.
1. Bemutatkozás
Az új Betacoronavirus (-CoVs vagy Beta-CoVs), a súlyos akut légúti szindróma coronavirus 2 (SARS-CoV-2) világjárvány, amely a 2019-es koronavírus-betegség (COVID{6}}) kitörését okozta , világszerte jelentős közegészségügyi kihívást jelent [1].
2019. december 31-én a WHO Kínai Országos Irodája értesült a Vuhanban (Kína Hubei tartomány) észlelt ismeretlen etiológiájú tüdőgyulladásos esetekről, amelyet később a SARS-CoV terjedésének központjának tekintenek-2.
A COVID{0}} jelenlegi megjelenése már a harmadik súlyos járvány, amelyet a -CoV okozott emberekben az elmúlt két évtizedben, a súlyos akut légzőszervi szindróma (SARS) és a közel-keleti légzőszervi szindróma (MERS) után, 2002-ben és 2012-ben [2]. Ugyanakkor a SARSCoV-2, amely az egyik legkeményebb védő külső héjjal rendelkezik, várhatóan nagyon ellenálló a nyálban vagy más testnedvekben, valamint a testen kívül, és ezáltal székletátviteli potenciállal rendelkezik [3].
A COVID{0}} patogenezise összetett, de koncepcionálisan leírható a gyulladással kapcsolatos három fő kóros folyamat tipikus modelljeivel – a klasszikus általános (kanonikus) gyulladás helyi megnyilvánulásaival, az akut szisztémás gyulladással és a krónikus szisztémás gyulladással. alacsony intenzitású [4]. Ez utóbbi folyamat valószínűsége az életkor előrehaladtával növekszik, különösen a metabolikus szindrómában, a 2-es típusú diabetes mellitusban és néhány más súlyos krónikus betegségben szenvedőknél [4,5]
A COVID{0}} patogenezisével kapcsolatos kutatás másik oldala a szelektív virulencia és patogenitási tényezők vizsgálata, amelyek általában a -CoV-vírusokra jellemzőek, vagy csak a SARS-CoV-ra{3}} jellemzőek. Ezek a tényezők határozzák meg az adott betegség sajátosságait. Így a SARS-CoV{5}} a hagyományos víruspatogenetikai stratégiák három különböző csoportját alkalmazza:
(1) A vírus felismerése celluláris receptorok által, amelyek három funkcionális csoportra oszthatók:
(a) Receptorok, amelyek lehetővé teszik a vírus behatolását a célsejtbe. E stratégia megvalósítása érdekében a vírusok arra törekednek, hogy növeljék kötési affinitásukat, valamint bővítsék e receptorok és koreceptoraik repertoárját [6].
(b) Receptorok, amelyek a vírus számára hasznos információkat továbbítják a célsejtnek (egy receptorban az A és B tulajdonságok kombinációja lehetséges).
(c) Sejtreceptorok, amelyek egy vírus felismerése után vírusellenes választ indítanak el. Ebben az esetben a vírusstratégia ezen receptorok és jelátviteli útvonalaik gátlása [6].
(2) Az antivirális válasz elnyomása mind a fertőzött célsejtekből, mind a gazdaszervezet immunrendszeréből. Ez a vírusstratégia több részre is felosztható:
(a) Az 1-es típusú (INF-I) és a 3-as típusú (IFN-III) interferonok (IFN-ek) korai vírusellenes hatásának gátlása.
(b) Az univerzális celluláris stressz jelátviteli útvonalak vagy specifikus immunpályák megzavarása.
c) A vírus védelme az antivirális válaszfaktorok közvetlen hatásától.
(3) A vírus azon képessége, hogy autoimmun és autoinflammatorikus folyamatok formájában immunrendszer-agressziót váltson ki szövetei ellen, külön stratégia a vírus túlélése szempontjából a gazdatestben.
A nagyszámú ismert és ismeretlen SARSCoV{0}} receptor jelenlétéről szóló új információ lehetővé teszi a fő vírusreceptor (ACE2) blokkolásának hatékonyságának reálisabb értékelését a COVID-19 terápiában. A vírus patogenitási tényezőinek az immunrendszerre gyakorolt hatásának fokozatosságának és redundanciájának mélyebb betekintése szükségessé teszi a COVID-19 patogenetikai terápia átfogóbb megközelítését.
Ennek az áttekintésnek tehát az a célja, hogy rendszerezze a közelmúltban feltárt vírus célsejtekbe való behatolási mechanizmusairól, az antivirális immunvédelem gátlásáról, valamint az autoimmun és autoinflammatorikus folyamatok kialakulásának lehetséges útjairól szóló adatokat. Az áttekintés megkísérli integrálni és rendszerezni a SARS-CoV-2 virulenciájának és patogenitásának különféle és egymásnak ellentmondó mechanizmusait.

2. A SARS-CoV-2 fertőzés általános jellemzői
A SARS-CoV-2 vírus a pozitív egyszálú RNS genomot tartalmazó burokkal rendelkező vírusok csoportjába tartozik [7]. A Nidovirales rendbe, a Coronaviridae családba, a Coronavirinae alcsaládba és a Betacoronavirus nemzetségbe sorolják [8].
A SARS-CoV-2 genom mérete jelentős és 29,99 kb [9]. Szervezete hasonló a többi CoV-hoz, és főként nyílt olvasási keretekből (ORF) áll. A SARS-CoV-2 genom körülbelül 67 százaléka ORF1ab. Ez utóbbi kódolja a poliproteinek szintézisét a fertőzött sejtben (1a, 1ab). A szintézis után a poliproteineket két proteáz (nsp3 és nsp5) 16 különálló nem szerkezeti fehérjévé (nsp1–16) bontja le: 11 teáskanál az ORF1a szegmensből (nsp1–nsp11) és 5 teáskanál az ORF1b szegmensből (nsp12–nsp16) [10] –12]. A SARS-CoV-2 genom fennmaradó 33 százalékát strukturális és kiegészítő (kiegészítő) fehérjék (ORF3a, ORF3b, ORF6, ORF7a, ORF7b, ORF8, ORF9b, ORF10) génjei képviselik. Az ORF-ek strukturális gének között oszlanak meg, és ennek megfelelően vírusfehérjéket kódolnak: orf3a, orf3b, orf6, orf7a, orf7b, orf8, orf9b, orf10 [12–21].
A SARS-CoV-2 négy szerkezeti fehérje – (1) spike (S) glikoprotein, (2) kis burok glikoprotein (E), (3) membránglikoprotein (M) és (4) nukleokapszid fehérje (N) ) – felelősek a vírus replikációjáért és strukturálásáért, a vírus sejtreceptorokhoz való kötődéséért (S), valamint a vírus patogenitásáért [14,22,23] (1. ábra).
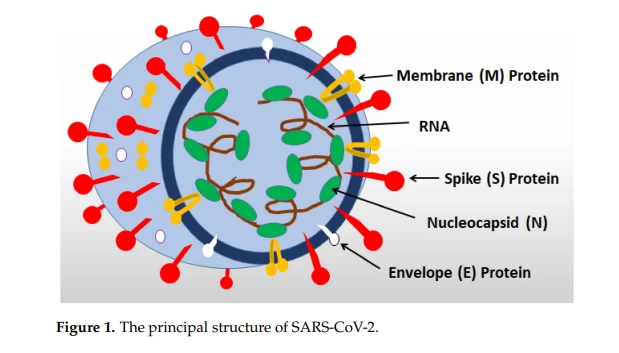
Összeállításuk után a vírusokat vezikulák szállítják a gazdasejt membránjába, és exocitózissal szabadulnak fel. Amikor a sejtfelszínre kerül, az S-protein lehetővé teszi a fertőzött és egészséges sejtek fuzionálását, ami nagy, többmagvú sejtek képződését eredményezi, amelyek a vírust a gazdaszervezetben terjesztik [24].
Mindhárom jól ismert -CoV, nevezetesen a SARS-CoV-1 (a SARS kórokozója), a MERS-CoV és a SARS-CoV-2 közös jellemzője, hogy képesek replikálódni a alsó légutakat és halálos tüdőgyulladást okoz [2]. A halálozás valószínűsége meredeken növekszik az akut légzési distressz szindróma (ARDS) kialakulásával [25]. Ebben az esetben a vírus terjedése a szervezetben, hipoxia, szöveti bomlástermékek bejutása a véráramba, a T-sejtek és makrofágok patológiás hiperaktivációja, valamint a leukociták, komplementrendszerek intravaszkuláris aktiválódása és a vérzéscsillapítás egy sor újraélesztési szindrómához vezet, amely patogenetikailag összefügg a következőkkel: szisztémás gyulladás [4,25,26].
A SARS-CoV-2 vírus lényegesen kevésbé halálos, mint a SARS-CoV-1 vagy a MERS-CoV, de sokkal könnyebben és gyorsabban terjed [27,28]. A hosszú lappangási idő és a COVID-19 tünetmentes változatainak jelenléte, valamint a fertőzőképesség és a fertőzőképesség magas szintje kihívást jelent ennek a betegségnek az azonosítását, nyomon követését és megszüntetését [27,28].
A SARS-CoV-2 fő fertőzési útja a légúti cseppek, de fontos lehet a fertőzött felülettel való érintkezés is [29]. A COVID{3}} lappangási ideje 3-14 nap, és az immunállapottól függ [30]. A COVID-19 tipikus tünetei közé tartozik a fáradtság, láz, száraz köhögés, rossz közérzet, torokfájás, íz- és/vagy szaglásvesztés, valamint egyes esetekben légszomj, hasmenés és a vírusos tüdőgyulladás jellegzetes jelei [31] ].
A vírusok speciális rétege az antivirális immunitás kiváltásáért felelős receptorok jelátviteli útvonalának gátlása. Ezek elsősorban mintázatfelismerő receptorok (PRR-ek), amelyek felismerik a kórokozóként ismert konzervált molekuláris struktúrákat vagy a sérüléssel összefüggő molekuláris mintákat (PAMP és DAMP). A PAMP-ok a mikrobiális kórokozókkal, míg a DAMP-ok a sejtkárosodás vagy -halál során felszabaduló gazdasejt-komponensekkel állnak kapcsolatban. A virális RNS endoszómákban történő felismerésére szolgáló fő PRR családok a Toll-like receptorok (TLR), míg a citoplazmatikus vírus RNS-t a RIG-I-szerű receptorok (RLR) ismerik fel [32].
Ezeknek a receptoroknak az aktiválása egy vírusellenes veleszületett immunválasz aktiválásához vezet, amely elsősorban az IFN-ek termelésével függ össze. A scavenger receptorok (SR) a molekulák egy speciális csoportja, amelyek nem szigorúan specifikus kölcsönhatásra képesek a vírusokkal [33]. Ez a receptorok nagy csoportja az immunitás és az anyagcsere metszéspontjában. Túlnyomórészt stroma makrofágokon és dendritikus sejteken expresszálódnak [34]. Ezenkívül az SR a PRR-ek kofaktoraiként működhet, beleértve a TLR-eket is, a vírusok veleszületett immunitású sejtek általi felismerésében és semlegesítésében, de bizonyos esetekben átjáróként is működhetnek a vírusok számára (beleértve a SARS-CoV-t is{4}} ) sejtek megfertőzésére [35].
Additionally, a common pattern in the pathogenicity of viruses, including CoVs, is their ability to suppress the production and function of IFNs of type 1 (multiple forms of IFN-α - 13 factors, IFN-β, IFN-ε, IFN-κ, IFN-ω), and type 3 (IFN-λ1–4), triggering hundreds (>300) IFN-stimulált gének (ISG) [36–40].
Szintén jelentős a vírusok hatása a celluláris stressz aktiválási mechanizmusaira immunkompetens sejtekben, mivel poliklonális aktivációt és limfociták (elsősorban T-sejtek) apoptózisát, makrofágok patológiás aktivációját és immunszuppressziót okoz [41].
Az RNS-vírusok, például a CoV-k sokkal nagyobb evolúciós sebességet mutatnak, mint a DNS-vírusok, mivel nagy érzékenységük van az RNS-polimeráz vagy reverz transzkriptáz által közvetített replikációs hibákra, valamint a víruspopuláció jelentős mérete és magasabb replikációs ráta [42,43]. . Jelenleg szinte lehetetlen az összes SARS-CoV-2 mutáció azonosítása, illetve azok kóros elváltozásokkal való kapcsolata, főként azért, mert vannak tünetmentes betegek [24].
A SARSCoV{0}} ismert genomiális epidemiológiájának globális elemzése azonban nyilvánosan elérhető [44]. Az Omicronra jellemző a tüskeproteinben található nagyszámú mutáció (több mint 30), valamint az nsp12 és nsp14 fehérjék új mutációi [45–47]. Az Omicron jobban átvihető, mint a Delta SARS-CoV-2 Európa-szerte elterjedt változata; jelentős immunelkerülésre képes (beleértve a jelenleg használt oltóanyagokat is), és gyorsabban terjed, mint a vírus bármely korábbi változata [48–54].
Összességében a jelenlegi járványos SARS-CoV-2 vírus genomja jelentős változásokon ment keresztül a 2020 januárjában kapott referenciagenomhoz képest. A virulenciát és patogenitást jelentősen megváltoztató legjelentősebb mutációk a Sproteinben fordulnak elő [9]. Az nsp12-ben, az N-proteinben káros változásokat is leírtak [55,56]. Az S-protein új mutációinak elterjedése potenciálisan csökkentheti a vakcinákra adott immunválasz hatékonyságát [57]. A sejtreceptorokhoz kötődő S-protein domén mind a 3686 lehetséges jövőbeni mutációjának szisztematikus felmérése azt mutatja, hogy a jövőbeni mutációk nagy valószínűséggel még fertőzőbbé teszik a SARS-CoV{13}} fertőzést [58].

3. SARS-CoV-2 receptorok
A koronavírusok spike S-glikoproteineken keresztül kötődnek a gazdaszervezet receptoraihoz, amelyek közvetítik a membránfúziót és a vírus behatolását [59]. A SARS-CoV-2 fő receptora a membrán angiotenzin-konvertáló enzim 2 (ACE2) [60]. Az ACE2-nek két izoformája van, és az egyik nem tud kötődni a SARS-CoV-hoz{10}} [61–63].
Az S-protein trimereket képez a vírus felszínén [64]. Az RBD-receptor kölcsönhatás után az S fehérje proteolitikus hasításon megy keresztül a gazdaproteázok N-terminális S1 alegységén és C-terminális S2 alegységén. Ezt a részleges proteolízist a transzmembrán proteáz szerin 2 (TMPRSS2) katalizálja, és aktiválhatja furin vagy furinszerű proteázok (pl. plazmin), illetve endocitózis után a katepszin B/L [64]. Az S1 alegység receptor-kötő doménje (RBD) közvetlenül kölcsönhatásba lép az ACE2-vel (2. ábra). Az S-protein trimerben azonban a három RBD közül csak az egyik fordítható felfelé egy receptorhoz hozzáférhető konformációban.
Ugyanakkor a SARS-CoV-2 alacsony aktivitású az ACE2-hez való kötődés szempontjából jelentős ideig, mivel az RBD-t az S-glikoprotein szénhidrát komponense védi, amely megvédi a vírust az antitestektől [ 65]. Ezért az RBD csuklós konformációs mozgáson megy keresztül, amely átmenetileg eltakarja vagy feltárja a receptorkötő determinánsokat [66]. Ez a SARS-CoV-2 tulajdonság korlátozza a vírus RBD-kötődését célzó antitestekkel és gyógyszerekkel történő semlegesítését.

2. ábra: A SARS-CoV-2 S-protein receptor funkciója. A protein konvertázok (pl. furin) a vírus ACE2-hez való kapcsolódása után hatnak. A furin hasítási hely jelenléte az S1/S2 határon a SARS-CoV-2-ban valószínűleg csökkenti a célsejt proteázoktól való függőséget [65]. A sejtfelszíni proteázok (pl. TMPRSS2) katalizálják az S1 hasítását és az S2 doméntől való elválasztását [64]. A savas lizoszómális proteázok a vírus endocitózisa után hatnak a vírus endoszómákban történő átalakulásának lizoszómális útjában. Ezen túlmenően az in vivo folyamatok összetettsége és a különböző sejttípusok SARS-CoV-2 fertőzése miatt más gazdaproteázok potenciálisan részt vehetnek a SARS-CoV-2 S fehérje hasonló hasításában [15] .
Így a receptorhoz való kapcsolódás után a proteolitikus feldolgozás aktiválja az S-proteint, és lehetővé teszi a vírus és a célsejt membránjainak fúzióját, majd a vírus RNS felszabadulását a sejt citoplazmájába.
Ebben az esetben a disztális S1 alegység a receptor felismerésében és megkötésében játszik szerepet, míg a lehorgonyzott S2 alegység a vírus és a gazdasejt membránjainak fúzióját közvetíti [67]. A SARS-CoV-1 endoszómális utakon is bejut a sejtekbe, ahol az S-proteint a vírus és az endoszómális membránok fúziója céljából aktiválják a tripszinszerű proteázok (pl. katepszin B) savas endoszomális környezetben [68] . Ez az út teljesen lehetséges a SARS-CoV-2 [69,70] esetében. Számos, az ACE2-vel szinergikusan ható koreceptor képes aktiválni az endoszomális útvonalat [65].
Az ACE2 genetikai variánsok spektrumának különbségei miatt az ACE2 receptorok különböző fokú kötődési affinitást mutatnak az S-proteinhez. Számos ACE2 variáció képes nagy affinitású kettős mutáns komplexeket képezni S-proteinnel, ami befolyásolhatja az egyén fertőzésre való fogékonyságát [71].
Ezenkívül az RBD doménben több száz változatot találtak, amelyek közül a V367F típusú mutáns, amely folyamatosan kering szerte a világon, nagyobb kötődési affinitást mutat az ACE2-hez [72]. Számos mutáció jelenléte az S-proteinben azt is jelzi, hogy a tüskeprotein képes új ligandspecifitási tulajdonságokra szert tenni [73]. A jelentések különösen kiemelik a SARS-CoV-2 alternatív ACE2-receptorok keresésének fontosságát, és arra utalnak, hogy az ACE2-t nem expresszáló csontvelő-sejtek megfertőződhetnek ezzel a vírussal [74].
A közelmúltban számos olyan membránfehérjét fedeztek fel, amelyek ACE2 kofaktorként vagy alternatív receptorként működhetnek (1. táblázat). Így az S-glikoprotein nem csak a fehérje részén keresztül tud kölcsönhatásba lépni a receptorokkal, hanem szénhidrát komponensével (az S1 alegység N-glikánjaival, amelyek oligomannózt és komplex cukrokat tartalmaznak, amelyek megvédik a vírust az antitestektől) lektinreceptorokhoz kötődve is [15, 75,76]. A lektinszerű S1 helyek pedig a heparinhoz kötődnek, ami befolyásolhatja, sőt megakadályozhatja a vírusinváziót [77]. Éppen ellenkezőleg, a lektinszerű S1 helyek kötődése a célsejt glikokalixhoz elősegítheti az inváziót, mivel a glikokalix a SARS-CoV-2 megkötődéséhez szükséges koreceptor cukrokat, nevezetesen O-acetilezett sziálsavakat [78] és heparán-szulfátot tartalmaz. [79].
Kimutatták, hogy a heparán-szulfát sokféle vírus behatolását fokozhatja [80]. A lektinszerű S1 domén és a célsejtek glikokalix kölcsönhatása kofaktoros jelentőséggel bírhat az ACE2 receptor működésében a SARS-CoV-2 sejtfertőzés során [79,81]. A SARS-CoV-2 S fehérje az RBD S1 doménben található RGD-motívum (Arg-Gly-Asp) integrin receptoraihoz való kötődésének lehetőségét is tárgyalják [82]. Ugyanakkor nem mindig világos, hogy ezek a kölcsönhatások hozzájárulnak-e a vírusinvázióhoz vagy a vírussemlegesítéshez.

Számos RNS-vírus extracelluláris vezikulumokat (exoszómákat és exoszómákat) használ az új gazdasejtekbe történő transzlokációhoz [107,108]. Ezek a vezikulák lehetővé teszik a vírusok számára, hogy vírusspecifikus receptorokon keresztül, valamint független módon megfertőzzék a sejteket. Feltételezték, hogy a SARS-CoV-2-töltött extracelluláris vezikulák felszabadulásához kapcsolódó sejttranszport útvonal potenciális mechanizmust jelenthet a COVID{5}} fertőzés visszaesésében [109]. Különösen azok az exoszómák, amelyek felszínükön ACE2-t, CD9-et és más tetraspaninokat expresszálnak, a COVID{9}} fertőzés közvetítői lehetnek [110]. Ugyanakkor az exoszómák átvihetik a vírusrészecskéket a fertőzött sejtekből az egészségesekbe, és modulálhatják a gazdaszervezet immunválaszát, így felhasználhatók a COVID kezelésére-19 [111].
Összességében a SARS-CoV-2 bejutása a gazdasejtekbe összetett, többtényezős folyamat. Még az ACE2-vel kapcsolatos fő mechanizmus is megköveteli számos segédmolekula részvételét a folyamatban – proteinázok, koreceptorok és expressziójuk aktivátorai. A koreceptorok jelenléte különösen lehetővé teszi a SARS-CoV-2 számára, hogy megfertőzze a membránokon alacsony ACE2-expressziójú sejteket. Ezzel párhuzamosan egyre több bizonyíték áll rendelkezésre alternatív ACE2 útvonalak elérhetőségére a célsejtek fertőzésére [100]. A SARS-CoV-2 tropizmusának különböző mechanizmusai az emberi szövetekben megmagyarázhatják annak nagyfokú fertőzőképességét, valamint a belső szervek vírusos invázióját a COVID{10}} progressziója során (1. táblázat).
A CD147-nek a SARS-CoV-2 ACE2-független receptoraként betöltött szerepére vonatkozó előzetes adatok [89] azonban nem erősítettek meg teljes mértékben [90]. A CD147 mechanizmus összetettebbnek és közvetettebbnek tűnik, és az ACE2 membránexpresszió szabályozásához kapcsolódik [90]. Ugyanakkor kimutatták, hogy az SR-B1 scavenger receptor, amely felismeri a nagy sűrűségű lipoproteineket (HDL), ACE2-függő módon elősegíti a SARS-CoV{13}} penetrációját [35]. A vírus S1 alegysége a koleszterin és a HDL komponensekhez kötődik, ami növeli a vírus felvételét.
Mivel az SR-B1 kölcsönhatásba lép ezekkel a receptorokkal, a SARS-CoV-2 könnyebben bejutott az ACE2-t expresszáló sejtekbe, amikor az SR-B1 expresszálódik. Az SR-B1-ről beszámoltak arról, hogy az ACE2-vel együtt expresszálódik humán tüdőszövetben és különféle extrapulmonális szövetekben [35]. Az a tény, hogy az SR-B1-nek számos funkciója van, többek között vírusfogó, immunmodulátor és víruspenetrációs intermedier [101], megmagyarázza a COVID-ban való részvételét-19.
Leírták a C-típusú lektin CD209L (L-SIGN) potenciális képességét, hogy független SARS-CoV-1 receptorként működjön a célsejteken [112,113]. Ezzel kapcsolatban felhívták a kutatók figyelmét a CD209L és a rokon CD209 fehérje (DC-SIGN) olyan receptorokként való azonosításáról szóló jelentésre, amelyek képesek közvetíteni a SARS-CoV{11}} behatolását az emberi sejtekbe [97]. . A CD209L és CD209 receptorok kölcsönhatásba lépnek az S-protein ligand-specifikus (ACE2-re) helyével az RBD-ben.
Ezenkívül a CD209L a sejtmembránon is kölcsönhatásba lép az ACE2-vel, ami arra utal, hogy szerepet játszik a CD209L és az ACE2 heterodimerizációja a SARS-CoV-2 behatolásában és fertőzésében olyan sejttípusokban, ahol mindkettő jelen van, például humán endotélsejtekben. Ez meghatározza a CD209L ACE{6}}független és ACE2-függő szerepét is a SARS-CoV{10}} bejutásában és fertőzésében. A CD209L-ről és a CD209-ről kimutatták, hogy alternatív receptorként szolgálnak a SARS-CoV-2 számára olyan sejttípusokban, ahol az ACE2 szintje alacsony vagy hiányzik. Eközben a CD209 vírusok befogása makrofágokban és dendritikus sejtekben nem e sejtek fertőzéséhez, hanem vírusrészecskék hasznosításához, más esetekben pedig a makrofágokkal érintkező T-limfociták fertőzéséhez vezethet [99].
Súlyos COVID-esetben{0}} szenvedő betegek tüdejében, bőrében és szérumában jelentős komplementaktiváció figyelhető meg [114]. A komplementrendszer aktiválása COVID-ban-19 különféle mechanizmusokban fordul elő, amelyek többsége a vérzéscsillapító rendszerek és a kallikrein-kininek aktiválásához, valamint az ér endotélium és más szövetek károsodásához kapcsolódik [115,116] . A SARS-CoV-2 viszont kimutatták, hogy a lektin útvonalon keresztül aktiválja a komplementet [117].
Bizonyított, hogy a SARS-CoV-2 S fehérje képes kötődni a membrán PRR-ekhez, beleértve a TLR-eket, különösen a TLR4-hez [100,118,119]. Feltételezhető, hogy az S-protein kötődik a TLR4-hez, és aktiválja a TLR4 jelátvitelt, hogy növelje az ACE2 expresszióját a sejtfelszínen, ezáltal megkönnyítve a SARS-CoV{11}} behatolását a II-es típusú alveolátumokba [120]. Ez hozzájárul a sejtpusztuláshoz, a felületaktív anyagok termelésének megzavarásához és az ARDS kialakulásához.
Feltételezhető, hogy a SARS-CoV-2 által okozott myocarditis összefüggésbe hozható a TLR4 aktivációjával és a veleszületett immunválasz ezt követő hiperaktiválásával [120]. A natív SARS-CoV-2 S-protein kötődik a TLR1-hez és a TLR6-hoz, bár a molekuláris dokkolási vizsgálatok szerint alacsonyabb kötési energiával, mint a TLR4 [119]. Fontos megjegyezni, hogy a TLR-ek bonyolult komplexeket képezhetnek más receptorokkal ligandumok, köztük SR, integrinek, tetraspaninok és Fc receptorok (FcR) jelenlétében [33,34]. Ez a forgatókönyv nem csak egyedi és jellegzetes vírusantigének, hanem a szervezet genetikai és fenotípusos homeosztázisában bekövetkezett egyéb változások egyidejű felismerését is kizárja. Ezek a változások, beleértve az endogén PRR ligandumok, különösen a DAMP felhalmozódását a vérben és más szövetekben, lavinaszerűen nőnek a vírusfertőzés előrehaladtával.
Az egyszálú SARS-CoV-2 RNS képes kötődni a TLR7-hez és a TLR8-hoz, míg a kettős szálú vírus RNS (amely átmenetileg keletkezik az egyszálú vírus RNS replikációja során) kötődhet a TLR3-hoz makrofágokban és dendritikus sejtekben [121]. Ezek a kölcsönhatások (az endoszómákban lévő TLR-eken keresztül) IFN-I válaszokat indukálnak és különböző citokinek termelődését, ami a vírusfertőzés elnyomását eredményezi [122].
Azonban az RLR családba tartozó PRR-ek, elsősorban a RIG-I (retinoinsavval indukálható gén I) és az MDA5 számos sejttípus citoplazmájában felismerik a SARS-CoV-2 RNS-t, IFN-függő stresszt indukálva a fertőzött sejtekben [37,123 ]. Ezek a receptorok kölcsönhatásba lépnek az RNS-replikáció során megjelenő vírus kettős szálú RNS-sel. Kaszpáz aktivációs és toborzási doménjük (CARD) van, amely különféle apoptotikus és gyulladásos jelátviteli útvonalakat aktivál. Az RLR jelátviteli útvonalak antivirális jelátvitelhez kapcsolódnak a mitokondriumokban (mitochondrial antiviral-signaling protein, MAVS). A MAVS több multifunkcionális fehérjekomplex termelődéséhez vezet RLR-függő aktiválás után. Az ER és a mitokondriális membránokon az RLR-MAVS kölcsönhatásba lép az STING-gel (interferon gének stimulátora) és a TRAF3-mal (TNFR-asszociált 3-as faktor), aktiválva a TBK1 (TANK-kötő kináz 1) és az IKK (B-kináz epsilon inhibitora) kinázokat [114,124 ].
Ezután ezek a kinázok aktiválják az IRF3 (interferon szabályozó faktor 3) és az NF-κB (nukleáris faktor-kappa B) transzkripciós faktorokat [124–126]. A STING ebben a forgatókönyvben kritikus PRR, mivel egyesíti a vírus RNS-re és DNS-re adott válaszokat, valamint az intracelluláris DAMP-okat (a citoszolba zárt endogén DNS) [127,128]. Az IKK és a TBK1 a TLR3 (aktiválja a TRAF3-at) és a TLR4 (a MyD88-on keresztül) jelátviteli útvonalakban is részt vesz [129,130]. Az RLR, TLR, citokinreceptorok és egyéb jelátviteli struktúrák, amelyek interferonok termelését (különösen az IRF3 aktiválása révén) és általában a celluláris stressz kialakulását (különösen a multifunkcionális NF-κB aktiválása révén) indukálják így összefonódnak egy vírusinvázió során.
COVID{0}}-ban szenvedő betegeknél az RLR/MAVS által közvetített jelátviteli útvonal nemcsak a vírusellenes válaszban játszik szerepet, hanem kudarca autoimmun betegségekhez is vezethet, és citokinvihart is kiválthat [37]. Ezen túlmenően a SARS-direkt CoV-2 hatása a nod-like-receptorra (NLR) és az intracelluláris homeosztázis másodlagos változásai vírus nem specifikus celluláris stresszútvonalakat indukálnak különböző sejtekben, mint például az NF-κB aktiváció és az NLRP3 gyulladásos összeállítás. [131,132].
A gyulladások pedig fokozzák az IL-1 és IL-18 szintézisét, valamint a piroptózist, a tervezett nekrózis egyik típusát, amelyben jelentős mennyiségű DAMP távozik a sejtből [133]. A gyulladásos fejlődésnek a körülményektől függően védő és patogén hatása is lehet. A COVID-19 diszfunkciója nemcsak a gazdaszövetek károsodását, hanem szisztémás gyulladás kialakulását is okozhatja [4]. A SARS-CoV-2 által befolyásolt egyéb celluláris stresszútvonalak a következők:
• Oxidatív stressz [134,135];
• Autofágia és lizoszómális stressz [136,137];
• Fehérjék ubiquitinációja; ez a folyamat fontos számos intracelluláris fehérje működésének és proteolízisének szabályozásában [138];
• A mitokondriális stressz különösen az RLR/MAVS jelátviteli útvonaltól függ [139];
• Endoplazmás retikulum (ER) stressz [140];
• Nem kódoló, szabályozó RNS-ek expressziója [141–144];
• Hősokk-fehérjék (HSP) expressziója [81,145];
• Sejtválasz a DNS-károsodásra [146,147];
• Pro-inflammatorikus sejtszekréciós fenotípus kialakulása, amely az egész szervezetre általánosítva citokinvihar szindrómaként nyilvánulhat meg.
Így a SARS-CoV-2 célsejtek felismerése és fordítva – a kórokozó felismerése a sejt vírusellenes védekezésének érzékelői által a vírusinvázió első szakasza. Ebben a forgatókönyvben nem csak a vírus fő receptora (ACE2) és coreceptorai kapcsolódnak be, hanem a vírus alternatív receptorai is. Ez lehetővé teszi a SARS-CoV-2 számára, hogy számos célsejtet megfertőzzen különféle emberi szervekben. Számos univerzális és vírusinvázió-specifikus celluláris stressz jelátviteli út indul el a vírus célsejtekbe való behatolása során.

Továbbá az egyes sejtek és a szervezet egészének szintjén kialakul az elsősorban IFN-függő immunrendszerek és a vírus létfontosságú tényezőinek már kialakult rendszere (vírus és rekrutált fehérjék) kölcsönös szembenállása. A csata kimenetele befolyásolja a fertőzés kialakulását és előrehaladását.
For more information:1950477648nn@gmail.com


